The Plasma Membrane and Membrane Transport
Plazma membranı ve taşıma mekanizmaları; 45 flashcard ve 20 gerekçeli çalışma sorusu
Physiology · Üsküdar Üniversitesi · Diş Hekimliği
Plazma membranı, hücrenin dış ortamla alışverişini seçerek düzenleyen dinamik sınırdır. Bu rehber, membranın moleküler yapısından başlayarak difüzyon, osmoz, taşıyıcı aracılı taşıma, aktif pompalar ve veziküler taşımayı aynı fizyolojik mantık içinde ele alır; amaç, bir maddenin hangi yoldan, hangi kuvvetle ve hangi koşulda hareket edeceğini açıklayabilmektir.
Önce her madde için üç soru sorun: Membranı nasıl geçiyor? Hareketin itici gücü nedir? Enerji doğrudan ya da dolaylı gerekiyor mu? İkinci turda Na⁺/K⁺ pompası ile osmozun hücre hacmini nasıl etkilediğini ilişkilendirin. Son turda tabloları kapatıp flashcard ve özgün soruları çözün; hatalı yanıtları ilgili slayt aralığına dönerek gerekçelendirin.
1. Plazma membranının yapısı ve akışkanlığı
Kaynak slaytlar: 1–8
1.1 Membran neden bir sınırdır?
Plazma membranı (plasma membrane), hücrenin içini çevreleyen sıvı özellikli lipid tabakası ve bu tabakaya yerleşmiş proteinlerden oluşur. Dersin başlığındaki iki sözcük birbirini tamamlar: membranın yapısı, hangi maddelerin kendiliğinden geçebileceğini belirler; taşıma, hücrenin dış ortamla farklı bileşimi korurken gerekli alışverişi sürdürmesini sağlar. Hücre çevresinden tümüyle yalıtılmış değildir. Oksijen ve besin alır, atık uzaklaştırır, iyon ve su dengesi kurar, sinyallere yanıt verir. Fakat geçirgenlik sınırsız olsaydı hücre içi sıvı (intracellular fluid, ICF) ile hücre dışı sıvı (extracellular fluid, ECF) arasındaki önemli farklar silinirdi. Bu nedenle membran, akışı durduran mutlak bir duvardan çok seçici bir sınır olarak düşünülmelidir.
İlk iki slayt dersin öğrenme hedeflerini ve ön bilgilerini verir. Sitoplazma, çekirdek ve hücre membranı ayrımını bilmek; ATP'yi kullanılabilir hücresel enerji olarak tanımak; Na⁺ ve K⁺ gibi iyonların yüklü parçacıklar olduğunu hatırlamak, sonraki mekanizmaları kavramayı kolaylaştırır. Konsantrasyon farkı bir tarafta diğerinden daha fazla parçacık bulunmasıdır. Bunun varlığı tek başına geçişi garanti etmez: geçiş için membranda uygun fiziksel yol da bulunmalıdır. Bu fikir, ders boyunca kanaldan difüzyon ile taşıyıcı kullanımı arasındaki ayrımın temelidir.
1.2 Lipid, protein ve karbonhidratın görev paylaşımı
Membranın ana yapısal iskeleti fosfolipid çift tabakadır (phospholipid bilayer). Fosfolipidin fosfat içeren polar başı suyu sever; iki yağ asidi kuyruğu ise hidrofobiktir. Sulu ECF ve ICF arasında kendiliğinden dizildiklerinde başlar iki taraftaki suya bakar, kuyruklar içeride birbirine yaklaşır. Böylece membran ortasında suyla iyi karışmayan bir bölge oluşur. Bu bölge, suda çözünen iyon ve birçok polar molekül için enerji bariyeri yaratırken, O₂ ve CO₂ gibi küçük ve apolar moleküllerin geçmesine daha elverişlidir. Membranın seçiciliğinin fiziksel başlangıcı budur; seçicilik ayrıca proteinlerin varlığına ve durumuna bağlıdır.
Membran proteinleri taşıma yolu, reseptör, enzim, hücreler arası tutunma elemanı ve yapısal bağlantı olarak görev yapar. Proteinler lipid tabakasını biyolojik açıdan kullanışlı hâle getirir: örneğin glukoz lipide rahatça çözünmese de bir taşıyıcı aracılığıyla geçebilir; bir hormon ise membranı geçmeden yüzeydeki reseptöre bağlanarak yanıt başlatabilir. Membran karbonhidratları protein veya lipidlere bağlı kısa zincirler hâlindedir. Dış yüzeyde hücresel tanınma, iletişim ve etkileşime katkı verirler. Buradaki üç bileşeni miktarına göre değil işlevine göre ayırın: lipid fiziksel bariyeri kurar, protein düzenlenmiş işi yapar, karbonhidrat dış yüzeye tanınma özelliği ekler.
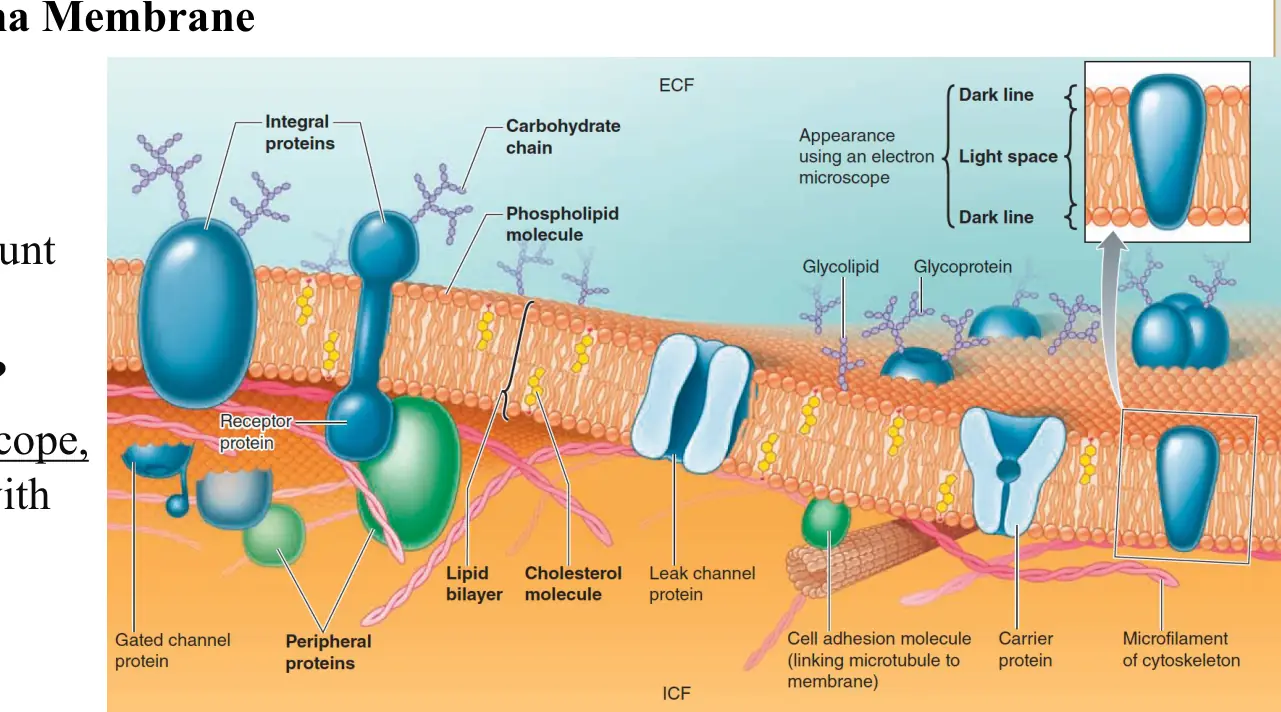
Elektron mikroskobunda görülen koyu–açık–koyu görünüm, slayt 4'te membranın moleküler düzeninin üç katmanlı görüntüsü olarak tanıtılır. Bu görünüm üç ayrı zar olduğu anlamına gelmez; tek fosfolipid çift tabakasının iki yüzü ile orta bölgesinin farklı elektron yoğunluklarıyla görünmesidir. Şekilde dış yüzeyde karbonhidrat zincirleri, çift tabakada kolesterol, tabakayı geçen ve yüzeye tutunan proteinler birlikte gösterilir. Böyle bir şekli yorumlarken önce ECF ve ICF tarafını, sonra fosfolipid baş ve kuyruklarını, en son proteinlerin membrana göre konumunu saptayın.
1.3 Akışkan mozaik ve kolesterol
Fosfolipidlerin yanal hareket edebilmesi, membranın biçim değiştirebilmesini ve proteinlerin belirli sınırlar içinde yer değiştirebilmesini sağlar. Akışkan mozaik modelinde (fluid mosaic model) “akışkan”, lipid ve birçok proteinin sabit bir taş gibi durmamasını; “mozaik”, farklı yapı ve görevlerin aynı tabakada yan yana bulunmasını anlatır. Akışkanlık, membranın füzyon ve vezikül oluşturma gibi olaylara katılmasına yardım eder. Ancak “bütün proteinler serbestçe dolaşır” sonucuna varmayın: bazıları iskelete, başka hücrelere veya protein komplekslerine bağlanarak daha sınırlı hareket eder. Slayt 8 ve 11'in birlikte okunması bu ayrımı açık eder.
Kolesterol, fosfolipid kuyrukları arasına yerleşir. Dersin vurgusu, tabakanın aşırı katı ya da aşırı akışkan hâle gelmesini sınırlayarak membranın bütünlüğüne ve esnekliğine katkı vermesidir. Kolesterolü yalnızca “akışkanlığı artıran” veya yalnızca “azaltan” madde olarak ezberlemek bağlama duyarsız olur. Burada sorulması gereken şey, lipidlerin hareketi ile zarın mekanik dayanıklılığı arasındaki dengeyi nasıl koruduğudur. Şekillerde sarı, kısa moleküller olarak çizilen kolesterolün çift tabakanın hidrofobik iç kısmına oturması, bu görevin yapısal açıklamasıdır.
1.4 Yapıdan geçirgenliğe geçiş
İlk sekiz slaytı tek bir nedensel zincir olarak da okuyabilirsiniz. Hücrenin çevresi ve içi su içerdiği için fosfolipidlerin polar başları iki sulu yüze döner. Arada kalan hidrofobik kuyruk bölgesi, yüklü ve polar maddelerin doğrudan geçişini güçleştirir. Böylece membran, ICF ile ECF'nin farklı bileşimlerini korumaya elverişli olur. Fakat aynı bariyer besin ve iyon alışverişini de zorlaştıracağı için membrana yerleşmiş proteinler seçici yollar açar. Karbonhidrat zincirleri, bu fiziksel bariyerin dış yüzüne tanınma işaretleri ekler. Kolesterol ise çift tabakanın iş görebilmesi için gereken kararlılık ve esneklik dengesine katkıda bulunur. Bu sıralama, bileşenleri tek tek ezberlemekten daha güçlüdür; çünkü her bileşenin hangi sorunu çözdüğünü gösterir. Fosfolipid yoksa tutarlı bir sınır yoktur; seçici protein yoksa birçok gerekli polar madde uygun hızda geçemez; yüzey işaretleri yoksa hücreler arası tanınmanın bir katmanı eksilir. Bu zincir, membranın hem ayıran hem ilişki kuran bir yapı olduğu sonucuna götürür.
Şekillerdeki ölçek ve renkler öğretim amaçlıdır. Mavi başlar veya sarı kolesterol parçaları gerçek hücrede aynı renkte değildir; çizim, moleküllerin birbirine göre konumunu göstermeyi amaçlar. Bir çizimi değerlendirirken “membranın dış yüzü hangisi?”, “karbonhidrat zincirleri hangi tarafta?”, “hidrofobik çekirdekten hangi madde geçebilir?” sorularını sorun. Bu üç sorunun yanıtı, sonraki kanal, taşıyıcı ve osmoz bölümlerinin temelini oluşturur. Özellikle fosfolipid çift tabakanın kendiliğinden oluşmasıyla proteinlerin seçici taşımayı sağlaması arasındaki ilişkiyi kurduğunuzda, taşıma türleri ayrı ayrı ezberlenmiş adlar olmaktan çıkar.
Lipid çift tabaka, ICF ile ECF'nin farklı çözünen madde derişimlerinde kalmasına olanak tanır. Ancak seçici geçirgenlik “lipidde çözünen her şey geçer, suda çözünen hiçbir şey geçmez” gibi mutlak bir kural değildir. Su lipidden yavaş da olsa geçebilir; su kanalları olan aquaporinler geçişi çok hızlandırır. İyonlar için seçici kanallar açıldığında, lipid çekirdeğini doğrudan aşmaları gerekmez. Bazı moleküller taşıyıcının şekil değiştirmesiyle geçer. Dolayısıyla gerçek membran geçirgenliği maddenin kimyasal niteliği, membran proteinleri ve o anda açık olan yolların bileşimidir.
| Bileşen | Membrandaki konum | Temel katkı | Soruda ipucu |
|---|---|---|---|
| Fosfolipid çift tabaka | İki sulu ortam arasında | Hidrofobik seçici bariyer, esneklik | O₂/CO₂ geçişi; iyonlara direnç |
| Kolesterol | Lipid kuyrukları arasında | Kararlılık ve akışkanlık dengesi | Aşırı katı/akışkan olmayı sınırlar |
| Proteinler | Tabaka içinde veya yüzeyde | Taşıma, resepsiyon, kataliz, tutunma | Kanal, taşıyıcı, pompa, reseptör |
| Karbonhidrat zincirleri | Dış yüzde protein/lipide bağlı | Tanınma ve hücresel etkileşim | Glikokaliks, kan grubu işaretleri |
- Amfipatik fosfolipidler sulu ortamda başlarını suya, kuyruklarını birbirine yöneltir.
- Çift tabaka ECF ile ICF arasında hidrofobik bir geçiş engeli kurar.
- Kolesterol tabakanın mekanik ve akışkan özelliklerini ayarlar.
- Proteinler seçici geçiş ve sinyal yolları, dış karbonhidratlar tanınma yüzeyi sağlar.
Bir konsantrasyon gradyanı ancak madde için geçilebilir bir yol varsa net akı oluşturur. “Fark var” ile “geçer” aynı önerme değildir.
Elektron mikroskobundaki koyu–açık–koyu görünüm, tek bir çift tabakanın görüntüsüdür. Dışarıdan içeriye üç ayrı lipid zarı saymak yapısal bir hatadır.
Hücre içinin dış ortama göre farklı tutulması, uyarılabilir hücrelerde elektriksel işlev ve tüm hücrelerde hacim kontrolü için ön koşuldur. Zar bütünlüğü bozulduğunda yalnızca bir molekülün geçişi değil, bütün gradyanların korunması etkilenir.
Fosfolipidlerin başı ve kuyrukları suya göre nasıl davranır?
Polar baş hidrofilik, iki kuyruk hidrofobiktir; bu özellik çift tabakayı kurar.
Membran niçin seçici bir sınırdır?
Hidrofobik lipid çekirdek bazı maddeleri sınırlar, protein yolları ise belirli maddelere geçiş sağlar.
Akışkan mozaik modelindeki “mozaik” neyi anlatır?
Farklı lipid, protein ve karbonhidrat ilişkili yapıların aynı dinamik membranda düzenlenmesini.
Kolesterolün ders slaytlarındaki ana işlevi nedir?
Membranın kararlılığı, esnekliği ve akışkanlık dengesine katkı vermek.
Elektron mikroskobunda üç katmanlı görünüm kaç plazma membranına karşılık gelir?
Tek fosfolipid çift tabakalı plazma membranına.
2. Membran proteinleri ve hücresel tanınma
Kaynak slaytlar: 9–23
2.1 İntegral ve periferik protein
İntegral membran proteinleri (integral membrane proteins) lipid tabakaya gömülüdür; bazıları membranı baştan başa geçer. Membranın hidrofobik iç kısmına dönük bölgeleri apolar, suya açık yüzleri daha hidrofiliktir. Böylece aynı protein hem lipid ortamında sabitlenebilir hem ECF ve ICF ile etkileşebilir. “İntegral” terimi yalnız taşıyıcıyı kapsamaz: kanal, reseptör, enzim ve adezyon görevli integral proteinler de vardır. Slayt 9'daki “geçit” benzetmesi önemli bir görevi öğretir, fakat tüm integral proteinlerin taşıyıcı olduğu anlamına gelmez.
Periferik proteinler (peripheral proteins) çift tabakanın yüzeyine veya integral proteinlere bağlanır; slayt 10 özellikle iç taraftaki örnekleri gösterir. Sitoplazmik iskeletle etkileşim, sinyal aktarımı ve protein komplekslerinin düzenlenmesi gibi işlerde bulunabilirler. Şekildeki sitoskeletal mikrofilamentler, periferik proteinlerin membran ile hücre içi iskelet arasında aracı olabileceğini açıklar. İntegral ile periferik ayrımını “önemli–önemsiz” olarak değil, lipid tabakayla topolojik ilişki olarak okuyun. Bir periferik protein geçiş poru oluşturmasa da taşıma proteininin konumunu ve işlevini etkileyebilir.
2.2 Taşıyıcı ile kanalın mekanik farkı
Taşıyıcı protein (carrier protein), belirli bir molekülü veya yakın akraba molekül grubunu bağlar; sonra kendi biçimini değiştirerek bağlanma yerini membranın diğer yüzüne açar. Glukoz gibi polar bir maddenin seçici geçişi bu mantıkla açıklanır. Taşıyıcının tanıma yeri bulunduğu için özgüllük belirgindir. Kanal proteini (channel protein) ise suyla dolu bir yol oluşturur. Uygun boyut, yük ve kanal yapısına sahip iyonlar, kanal açıkken kendi elektrokimyasal gradyanları yönünde akabilir. Slayt 14'ün son paragrafı yanlışlıkla taşıyıcı özgüllüğünü kanal başlığında tekrarlar; kanalın seçiciliği, taşıyıcıdaki her geçişte bağlanma ve konformasyon döngüsüyle karıştırılmamalıdır.
Kanallar sızıntı kanalları (leak channels) ve kapılı kanallar (gated channels) olarak sunulur. Sızıntı kanalları sürekli bir geçiş olanağı sağlar; “sürekli açık” demek her anda iki yöne eşit net akı olduğu anlamına gelmez. Net yön iyonun elektrokimyasal gradyanına bağlıdır. Kapılı kanallar ise uyaranla açılır veya kapanır. Voltaj kapılı kanal membran potansiyeline; ligand/kimyasal kapılı kanal bir haberci molekülün bağlanmasına; mekanik kapılı kanal gerilme veya deformasyona; termal kapılı kanal sıcaklık değişimine yanıt verir. Farkı uyaranı okuyarak bulun; kanaldan geçen iyonun adı tek başına kapı tipini söylemez.
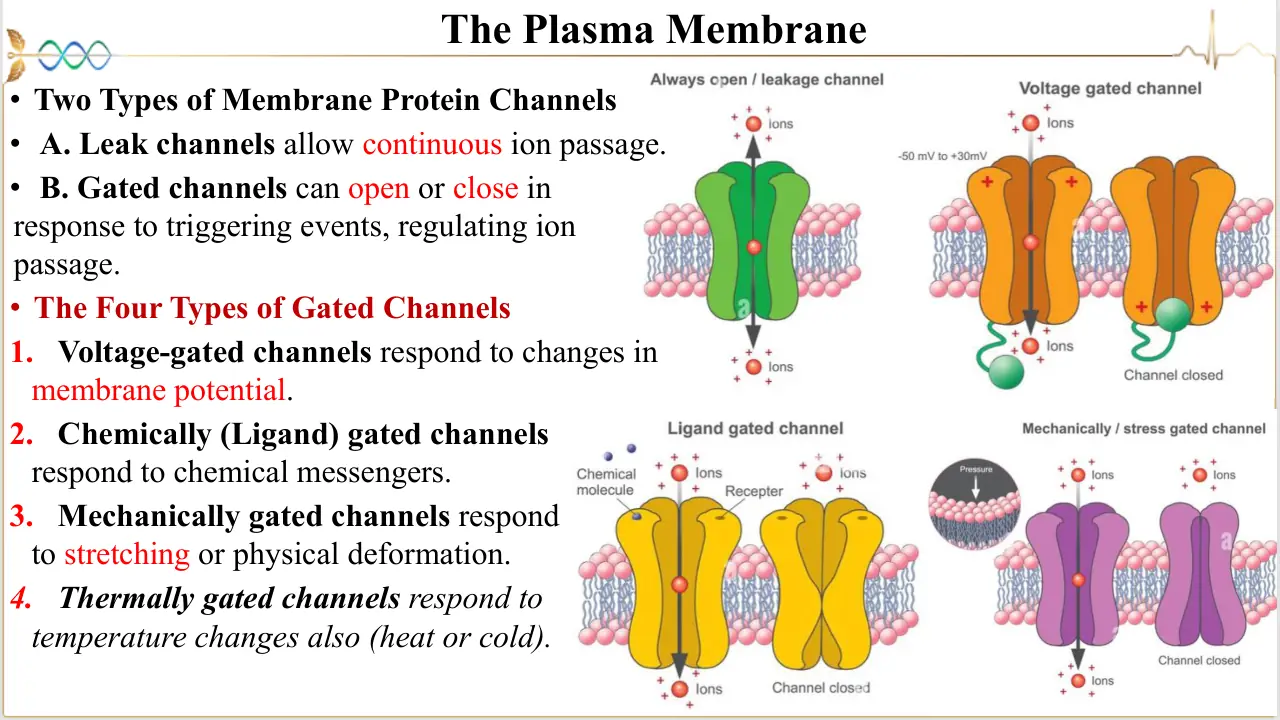
| Kavram çifti | Birinci kavram | İkinci kavram | Ayırt ettiren soru |
|---|---|---|---|
| İntegral–periferik | Lipid tabakaya gömülü | Yüzeyde/başka proteine bağlı | Protein tabakanın içine uzanıyor mu? |
| Kanal–taşıyıcı | Açık sulu geçit, iyon akışı | Bağlanma ve şekil değişimi | Her taşınan molekül için döngü gerekiyor mu? |
| Sızıntı–kapılı kanal | Geçişe sürekli açık | Uyaranla açılır/kapanır | Kapıyı hangi olay değiştiriyor? |
| Voltaj–ligand kapısı | Elektriksel potansiyel değişimi | Kimyasal haberci bağlanması | Tetikleyici elektrik mi, molekül mü? |
- Taşıyıcı önce uygun çözünen maddeyi belirli bağlanma yerinde tanır.
- Bağlanma, taşıyıcının şekil değişimini ve maddenin diğer yüze açılmasını sağlar.
- Kanalda uygun iyon, kanal açıkken sulu gözenekten akar; her iyon için aynı bağlanma–dönüş döngüsü gerekmez.
- Her iki yolun net yönü, pasif çalıştıklarında uygun gradyanla belirlenir.
Na⁺ kanalıyla K⁺ kanalının farkı yalnız “delik genişliği” değildir; protein yapısının oluşturduğu seçici ortam, hangi iyonun elverişli geçeceğini belirler.
Kanal açılması bir uyarana bağlı olabilir; bu, kanaldan geçen iyonun ATP kullanarak gradyana karşı pompalandığı anlamına gelmez. Kanal üzerinden net iyon akışı pasiftir.
Sinir ve kas hücrelerinde voltaj kapılı kanallar hızlı elektriksel olayların; mekanik duyarlı kanallar ise fiziksel deformasyonun elektriksel sinyale çevrilmesinin örnekleridir. Aynı iyon farklı hücrelerde farklı kapı tiplerinden geçebilir.
2.3 Yedi işlev grubunu birlikte okuyun
Slayt 12, membran proteinlerini yapıya göre integral/periferik, işleve göre taşıma, yapısal bağ, enzim ve reseptör olarak düzenler. İşlev şemasında taşıma proteinleri kanal ve taşıyıcıya ayrılır; kanallar açık ya da kapılı olabilir. Yapısal proteinler hücre bağlantıları ve sitoskeletonla; enzimler metabolizma ve sinyal aktarımıyla; reseptörler haberci tanıma ve reseptör aracılı endositozla ilişkilendirilir. Bu sınıflandırmalar birbirini dışlayan tek etiketler değildir: aynı kompleks hem integral konumda bulunabilir hem de birden çok işlevsel ortakla çalışabilir.
Slayt 13–21'deki işlev sırası şöyledir: (1) taşıyıcılar, (2) kanallar, (3) vezikül kenetlenme işaretlerini kabul eden proteinler, (4) membrana bağlı enzimler, (5) reseptörler, (6) hücre adezyon molekülleri (CAMs) ve (7) glikoproteinler. Üçüncü grup salgı vezikülünün doğru hedef membrana kenetlenmesini sağlar; slayt 16'daki çizimde Golgi'den tomurcuklanan vezikülün kaplamasını bırakıp v-SNARE ile plazma membranındaki t-SNARE'e eşleşmesi gösterilir. Bu bağlanma, uygun sinyaller sonrasında membran füzyonuna ve hormon, nörotransmitter veya enzimin ECF'ye salınmasına zemin hazırlar. Slayt 17 aynı son basamağı vurgular. Kenetlenme, füzyon ve salımı tek bir belirsiz “dışarı çıkış” olarak ezberlemeyin; birbirini izleyen olaylardır.
Membrana bağlı enzimler, belirli kimyasal reaksiyonları yüzeyde katalizleyerek metabolizma ve sinyal aktarımına katkı verir. Slayt 18'in leptin reseptörü/JAK2–STAT3 çizimi, reseptör ile enzim bağlantısının bir örneğidir: dıştan gelen işaret membran üzerinde tanınır, hücre içinde fosforilasyon basamaklarına ve gen ifadesini etkileyen yanıta uzanır. Bu örnek tüm reseptörlerin aynı yoldan çalıştığını göstermez. Reseptör proteini, hormon, nörotransmitter veya büyüme faktörü gibi bir dış haberciyi özgül olarak tanır ve uygun hücresel yanıtı başlatır. Taşıma kanalının “maddenin içeri girmesi” işiyle reseptörün “mesajın algılanması” işi ayrıdır; bazen ligand hücre içine hiç taşınmadan yanıt oluşur.
CAMs (cell adhesion molecules) hücreyi komşu hücreye veya ekstrasellüler matrikse bağlar. Dokunun mekanik bütünlüğü ve hücrelerin birlikte örgütlenmesi açısından önemlidir. Slayt 20'nin “bir arada tutma” vurgusu, yalnız yapışmayı değil membran ile doku mimarisi arasında fiziksel köprü kurmayı anlatır. Slayt 21'deki şekil eritrosit membranının altında spektrin, aktin, ankyrin ve protein 4.1 gibi iskelet bağlantılarını gösterir; Band 3 ve glikoforinler gibi membran proteinleriyle kurulan bağlantı eritrosit biçiminin korunmasına yardım eder. Bu resim, slaytın glikoprotein başlığından daha çok membran–sitoskeleton bağlantısını açıklar; son bölümde bunun görsel kapsamına ilişkin not vardır.
2.4 Glikokaliks ve kimlik işaretleri
Yedi işlev grubunu pekiştirmek için aynı hücre yüzeyinde sırayla gerçekleşebilecek olayları düşünün. Dışarıdaki bir hormon reseptöre bağlanır; reseptörün içe uzanan kısmı veya ona bağlı enzimler hücre içi sinyal başlatır. Bu sinyal bir kanalın açılma olasılığını ya da taşıyıcının yüzeye getirilmesini değiştirebilir. Hücre komşusuna CAM aracılığıyla tutunurken glikokaliks dış çevreyle temas eder. Sonunda salgı vezikülü kenetlenip içeriğini dışarı bırakabilir. Bu zincirde reseptör haberin alınmasında, enzim kimyasal basamakta, kanal ve taşıyıcı madde akışında, CAM yapısal ilişkide, kenetlenme proteinleri vezikül füzyonunda görev alır. İşlevlerin bir hücrede birlikte bulunması, birbirine eşdeğer oldukları anlamına gelmez. Slayt 12'nin sınıflandırma şemasını bu olay zincirine yerleştirmek, yedi başlığı yalnız isim listesi olarak öğrenmekten daha açıklayıcıdır.
Membran proteinlerinin işlevini “hücre içi–hücre dışı” yönüyle de test edin. Bir reseptörün bağlanma bölgesi dış tarafta, sinyali ileten ortakları iç tarafta bulunabilir; bu topoloji dış olayı iç yanıta bağlar. Bir kanal iki ortam arasında sürekli sulu yol açabildiğinde iyonun akı yönünü protein değil gradyan belirler. Bir taşıyıcı ise iki tarafa sırayla açıldığı için kargoyu bağlama ve bırakma adımları önem kazanır. Membrana bağlı enzim, tepkimesini belirli bir yüzeyde düzenleyebilir. Periferik protein hücre iskeletine bağlanınca integral proteinin yerleşimini kısıtlayabilir. Bu örnekler, slayt 9–12'deki yapısal sınıflandırma ile slayt 13–21'deki işlevsel sınıflandırmanın neden ayrı tutulduğunu açıklar: konum tek başına görevi belirlemez; görev, proteinin hangi molekülle ve membranın hangi yüzünde karşılaştığıyla anlaşılır.
Glikoprotein, üzerinde karbonhidrat zinciri taşıyan proteindir; glikolipid, karbonhidratın lipide bağlandığı yapıdır. Bu zincirlerin hücrenin dış yüzünde oluşturduğu şekerce zengin katmana glikokaliks (glycocalyx) denir. Dışarı bakan konumları, komşu hücrelerin ve çözünmüş moleküllerin hücreyle ilk karşılaştığı yüzey olmalarını sağlar. Tanınma, doku oluşumu ve hücreler arası etkileşim bu nedenle membran karbonhidratlarıyla ilişkilidir. “Kendinden olanı tanıma” ifadesini tek başına tüm bağışıklık bilgisinin yerine koymayın; slaytın burada verdiği ana fikir hücre yüzeyindeki moleküler kimlik işaretleridir.
ABO kan grubu örneğinde eritrosit yüzeyindeki karbonhidrat düzeni önemlidir. Slayt 23'te A, B ve O antijenleriyle birlikte RhD etiketi de görünür. Aynı çizimde yer almaları kimyasal olarak aynı tür oldukları anlamına gelmez: ABO tanımlayıcıları şeker yapılarıyla, RhD ise proteinle ilişkilidir. Sınavda “yüzey işareti” genel terimi doğru olabilir; “hepsi karbonhidrattır” genellemesi yanlış olur. Eritrosit şeklinin korunmasında spektrin–ankyrin ağı ve membran bağlantılarının rolünü, kan grubu tanınmasından ayrı ama aynı zarın işlevleri olarak düşünün.
- Dış haberci özgül membran reseptörüne bağlanır; uygun sinyal yolu etkinleşir.
- Hücre içindeki yanıt enzim, iskelet veya salgı sistemini düzenleyebilir.
- Salgı vezikülü hedef plazma membranına kenetlenir; v-SNARE/t-SNARE eşleşmesi füzyona yardım eder.
- Füzyon sonrasında içerik ECF'ye bırakılır ve vezikül zarı membrana katılır.
“İntegral mi periferik mi?” konumu; “kanal mı reseptör mü?” işlevi sorar. Aynı proteini iki ayrı eksende tanımlayabilirsiniz.
Glikokaliks dış yüzdeki karbonhidrat örtüsüdür; spektrin–ankyrin ağı eritrosit membranının iç yüzündeki yapısal bağlantıdır. İki şekli benzer membran bağlamında görmek onları aynı yapı yapmaz.
Eritrosit yüzeyindeki ABO ve RhD antijenlerinin ayrımı, kan grubu uyumunu anlamanın moleküler başlangıcıdır. Şekil, yüzey işaretinin yalnız miktarını değil kimyasal niteliğini de sorgulamayı öğretir.
İntegral ve periferik proteinler hangi ölçüte göre ayrılır?
Lipid çift tabakaya gömülme ve membran yüzeyine bağlanma durumlarına göre.
Dört kapılı kanal türünün tetikleyicileri nelerdir?
Voltaj değişimi, ligand bağlanması, mekanik deformasyon ve sıcaklık değişimi.
CAMs hangi iki bağlanma türüne yardım eder?
Hücre–hücre ve hücre–ekstrasellüler matriks bağlanmasına.
Glikokaliks hangi moleküllerin zincirlerinden oluşur?
Dış yüzeydeki glikoprotein ve glikolipidlere bağlı karbonhidrat zincirlerinden.
ABO ve RhD antijenlerinin kimyasal ayrımı nedir?
ABO antijenleri karbonhidrat temellidir; RhD membran proteinidir.
3. ECF–ICF farkı ve taşımanın sınıflandırılması
Kaynak slaytlar: 24–32
3.1 Kompartımanları ayıran seçici bariyer
Bu bölümdeki üç sıvı alanını birbirine karıştırmamak önemlidir. Plazma ile interstisyel sıvı hücre dışındadır, fakat aralarında kapiller duvar bulunur. ICF ise hücre zarının içindedir. Dolayısıyla plazma–interstisyel farkı ile ECF–ICF farkı aynı anatomik sınırdan kaynaklanmaz. İyon grafiğini okurken önce hangi iki alanın karşılaştırıldığını belirtin; sonra yük ve derişim ilişkisini yorumlayın.
ECF hücre dışındaki sıvı ortamın genel adıdır; plazma ve interstisyel sıvı bunun ayrı kompartımanlarıdır. ICF hücre içindeki sıvıdır. Plazma ile interstisyel sıvıyı kapiller duvar; interstisyel sıvı ile ICF'yi plazma membranı ayırır. Slayt 24'teki grafiğin üç sütunu bu sınırları gösterir. Önemli iyon farkı, Na⁺'ın ECF'de, K⁺'ın ICF'de başlıca katyon olmasıdır. Bu dağılım yalnız “moleküller kendiliğinden orada kaldığı” için oluşmaz; Na⁺/K⁺-ATPazın sürdürdüğü aktif iyon taşınması ve membranın seçici geçirgenliği birlikte rol oynar. Aynı iyon dağılımı, sinir uyarısı ve kas kasılması için kullanılacak elektrokimyasal gradyanların kaynağıdır.
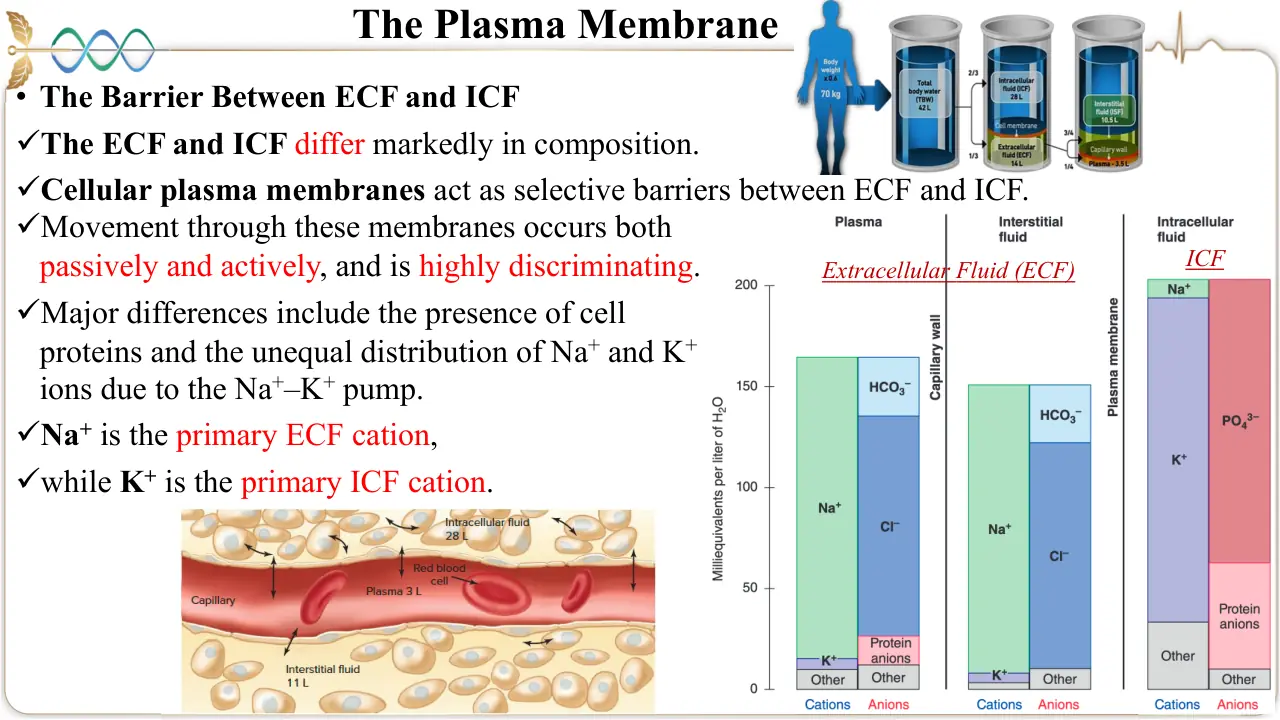
ECF'de Na⁺'a eşlik eden başlıca anyonlar Cl⁻ ve HCO₃⁻; ICF'de belirgin negatif yük kaynakları fosfat türleri ve negatif yüklü proteinlerdir. Slayt 25'te gösterilen yük dengesi, her kompartımanın büyük hacminde yaklaşık elektriksel nötrlüğün korunmasıdır. Bununla çelişmeden, membranın iki yüzüne çok yakın bölgelerdeki küçük yük ayrımı membran potansiyeli oluşturur. “İçeride negatif potansiyel var” demek tüm ICF'nin büyük miktarda net negatif yükle dolu olduğu anlamına gelmez. Küçük bir yüzey yük ayrımı, iyonların geçiş eğilimini önemli ölçüde etkileyebilir. Bu ayrım elektriksel gradyanı anlamak için gereklidir.
3.2 Sınıflandırma tek bir çizelge değil, birkaç sorudur
Membran taşınmasını slayt 26–30 iki farklı açıdan sınıflandırır. Yardım gereksinimi bakımından, madde lipid çift tabakayı doğrudan geçiyorsa yardımsız; kanal, taşıyıcı veya vezikül kullanıyorsa belirli anlamda yardımlıdır. Ancak dersin slayt 28 ve özet tablo 80'de kullandığı özel sınıflandırmada kanaldan difüzyon “unassisted/yardımsız” başlığı altında da yer alır; burada kastedilen, kanalın gradyana karşı enerji kullanan taşıyıcı gibi davranmamasıdır. Protein yapısal olarak hâlâ gereklidir. Bu terimsel farklılığı son bölümde ayrıca açıklıyoruz. Enerji gereksinimi bakımından pasif taşınma doğrudan ATP harcamadan elverişli gradyan yönündedir; aktif taşınma, gradyana karşı işi doğrudan ATP veya önceden kurulmuş başka bir gradyanın enerjisiyle yapar. Veziküler taşınma, zarı biçimlendirip kargo hareket ettirmek için enerji gerektirir.
Lipid çözünürlüğü ve boyut geçiş yolunu belirleyen ilk iki özelliktir. O₂ ile CO₂ gibi küçük, lipidde iyi çözünen maddeler çift tabakadan kolay geçer. Yüklü iyonun hidrofobik çekirdeği doğrudan aşması zordur; açık ve uygun kanala gereksinim duyar. Glukoz gibi polar ve daha büyük moleküller ise özel taşıyıcılar kullanır. Slayt 28'de kanallar için “0,8 nm'den küçük” ifadesi genel bir öğretim kestirmesidir; her kanalın izin verdiği çap ve kimyasal seçicilik kendine özgüdür. Salt boyuta bakıp “her küçük hidrofilik madde her kanaldan geçer” sonucu çıkarılmaz.
3.3 Kimyasal, elektriksel ve elektrokimyasal gradyan
Konsantrasyon gradyanı, parçacığın yüksek derişimden düşük derişime net hareket etme eğilimidir. Elektriksel gradyan, yükün membran boyunca potansiyel farkından doğan etkidir; katyonlar negatif tarafa, anyonlar pozitif tarafa çekilir. İyonlar için toplam yönü elektrokimyasal gradyan belirler. Slayt 32'nin iki yüklü parçacık örneği, iki kuvvetin bazen aynı yönde, bazen birbirine karşı olabileceğini gösterir. Örneğin dışarıda daha fazla katyon varsa kimyasal kuvvet içeri yönelir; iç yüz negatifse elektriksel kuvvet de içeri yönelir ve net eğilim güçlenir. İç yüz pozitif varsayılsaydı elektriksel etki kimyasal etkiye karşı koyabilirdi. Gradyanların büyüklüğü eşitse net akı sıfırlanabilir; tek bir kuvvetin varlığı geçiş yönünü tek başına belirlemez.
Yüksüz molekülde membran voltajı doğrudan elektriksel kuvvet uygulamaz; bu yüzden slayt 32'nin ilk paneli yoğunluk farkını esas alır. İyon için ise “konsantrasyonu dışarıda yüksek” demek, tüm şartlarda içeri net akı olacağını kanıtlamaz. Üstelik zar geçirgen değilse veya kanal kapalıysa elverişli gradyan da akı üretmez. Pasif taşınma tabirini böylece iki koşulla birlikte okuyun: uygun kuvvet ve uygun yol. Slayt 30'da ATP simgesiyle gösterilen aktif taşıma, molekülü daha seyrek taraftan daha yoğun tarafa götüren işi temsil eder; gerçek iyon hareketlerinde elektriksel kuvvet de değerlendirilir.
| Soru | Pasif hareket | Aktif hareket |
|---|---|---|
| Enerji kaynağı | Parçacıkların termal hareketi ve mevcut gradyan | Doğrudan ATP veya ATP ile kurulmuş iyon gradyanı |
| Net yön | Elverişli kimyasal/elektrokimyasal gradyan | Taşınan maddenin gradyanına karşı olabilir |
| Yol örneği | Lipid tabaka, açık kanal, kolaylaştırılmış difüzyon | Pompa, ikincil aktif taşıyıcı, vezikül |
| Protein gerekliliği | Yola göre değişir | Pompada/taşıyıcıda gereklidir; vezikülde membran makinesi kullanılır |
- Maddenin apolar mı, iyon mu, büyük/polar mı olduğunu belirleyin.
- Lipidden doğrudan geçiş, açık kanal, taşıyıcı ya da vezikül yolu var mı diye bakın.
- Konsantrasyon farkını; iyon için ayrıca membran potansiyelini değerlendirin.
- Net hareket kendi gradyanı yönündeyse pasif, ona karşıysa enerji bağlantısını araştırın.
Kompartımanların büyük hacimleri yaklaşık nötr kalırken membrana yakın çok küçük yük ayrımı potansiyel yaratır. Bu iki ifade aynı anda doğrudur.
Slaytın bazı şemaları kanalı yardımsız difüzyonda sayar; kanal yine integral proteindir. “Yardımsız” burada ATP kullanan taşıyıcı döngüsünün bulunmamasını vurgular.
Na⁺ ve K⁺ dağılımının korunması, sinir ve kasın elektriksel işlevinin arka planıdır. Bir iyonun normal aralığı tek başına yeterli bilgi vermez; onun hangi kompartımanda bulunduğu da önemlidir.
ECF ve ICF'nin başlıca katyonları hangileridir?
ECF'de Na⁺, ICF'de K⁺.
ECF'de Na⁺'a başlıca hangi anyonlar eşlik eder?
Cl⁻ ve HCO₃⁻.
Elektrokimyasal gradyan hangi iki etkinin birleşimidir?
Konsantrasyon ve elektriksel potansiyel farklarının.
Kapalı kanalı olan bir iyon için elverişli gradyan net akı sağlar mı?
Hayır; uygun ve açık geçiş yolu gerekir.
Slayt 28'de kanal neden “yardımsız” başlığında görülebilir?
Dersin gradyan yönünde, ATP harcamayan difüzyonu vurgulayan terminolojisi nedeniyle; kanal proteini yine gereklidir.
4. Difüzyon ve Fick yasası
Kaynak slaytlar: 33–41
4.1 Rastgele hareketten net akıya
Difüzyon (diffusion), moleküllerin ısıdan kaynaklanan sürekli rastgele hareketi sonucunda bir bölgede daha fazla bulunan parçacıkların daha seyrek bölgeye doğru net dağılmasıdır. Tek bir molekül “aşağı yönü seçmez”; sağa ve sola rastgele adımlar atar. Ancak yüksek derişimli tarafta daha çok molekül bulunduğu için birim zamanda karşıya geçenlerin sayısı ortalamada daha fazladır. Slayt 33'ün çizimi bu mikroskobik hareket ile makroskobik yönlü sonucu bir araya getirir. Basit difüzyon, slayt 34'te çözünenin çözücüde üniform yayılması olarak anlatılır; membran bağlamında lipid içinden veya açık kanaldan, taşıyıcı döngüsü olmaksızın gerçekleşen pasif geçişe de uygulanır. Bu iki kullanımın ortak noktası enerji kaynağının parçacıkların kendi hareketi olmasıdır.
Net difüzyon, iki yöndeki molekül geçişlerinin farkıdır. Zamanla konsantrasyon farkı azaldığında net akı da azalır. Dinamik denge (dynamic equilibrium) oluştuğunda moleküller hareket etmeyi bırakmaz; karşıt yönlerdeki ortalama akılar eşitlendiği için gözlenen net değişim sıfır olur. Slayt 35'in “no net change” ifadesinin özellikle bu anlamını koruyun. Tüm maddeler için eşit derişim zorunlu sonucu yalnız serbestçe geçebilen, yüksüz ve başka kuvvetlerden etkilenmeyen madde örneğinde düşünülür; yüklü iyonlarda elektriksel denge nedeniyle derişimler eşit olmayabilir.
Bir membran iki farklı derişimi ayırdığında net difüzyon için gradyan ile geçirgenlik birlikte gerekir. O₂'nin akciğer hava–kan bariyerini geçişi, yüksekten düşüğe derişim/parsiyel basınç farkına örnektir. Hücre içi büyük proteinler için ise dışarıya doğru bir konsantrasyon farkı olmasına rağmen membran geçirgen değildir; bu yüzden basitçe dışarı difüze olmazlar. Böylece “konsantrasyon farkı” ve “maddeyi geçiren yol” kavramlarının bağı yeniden görünür. Kanalların kapanması veya membran kompozisyonunun değişmesi, aynı fark altında akıyı değiştirebilir.
4.2 Fick yasasının çarpanları
Fick yasası, bir membran boyunca net difüzyon hızının nasıl değişeceğini düzenli düşünmek için kullanılır. Slayt 37 ve 41'in birleştirilmiş anlatımında yaklaşık ilişki net difüzyon hızı ∝ yüzey alanı × konsantrasyon farkı × membran geçirgenliği biçimindedir. Geçirgenlik ise maddenin lipidde çözünürlüğü ve boyutuna, ayrıca membranın kalınlığı/kompozisyonuna bağlıdır. Slayt 37, ders için değiştirilmiş bağıntıyı Q ∝ (ΔC × A × β)/(√MW × ΔX) şeklinde gösterir: ΔC konsantrasyon farkı, A yüzey alanı, β lipid çözünürlüğü, MW molekül ağırlığı, ΔX difüzyon mesafesi veya kalınlıktır. Bu bağıntıyı evrensel tüm maddelere sayısal tahmin yapan denklem gibi değil, slaytta verilen yön ilişkilerini toplayan model gibi kullanın.
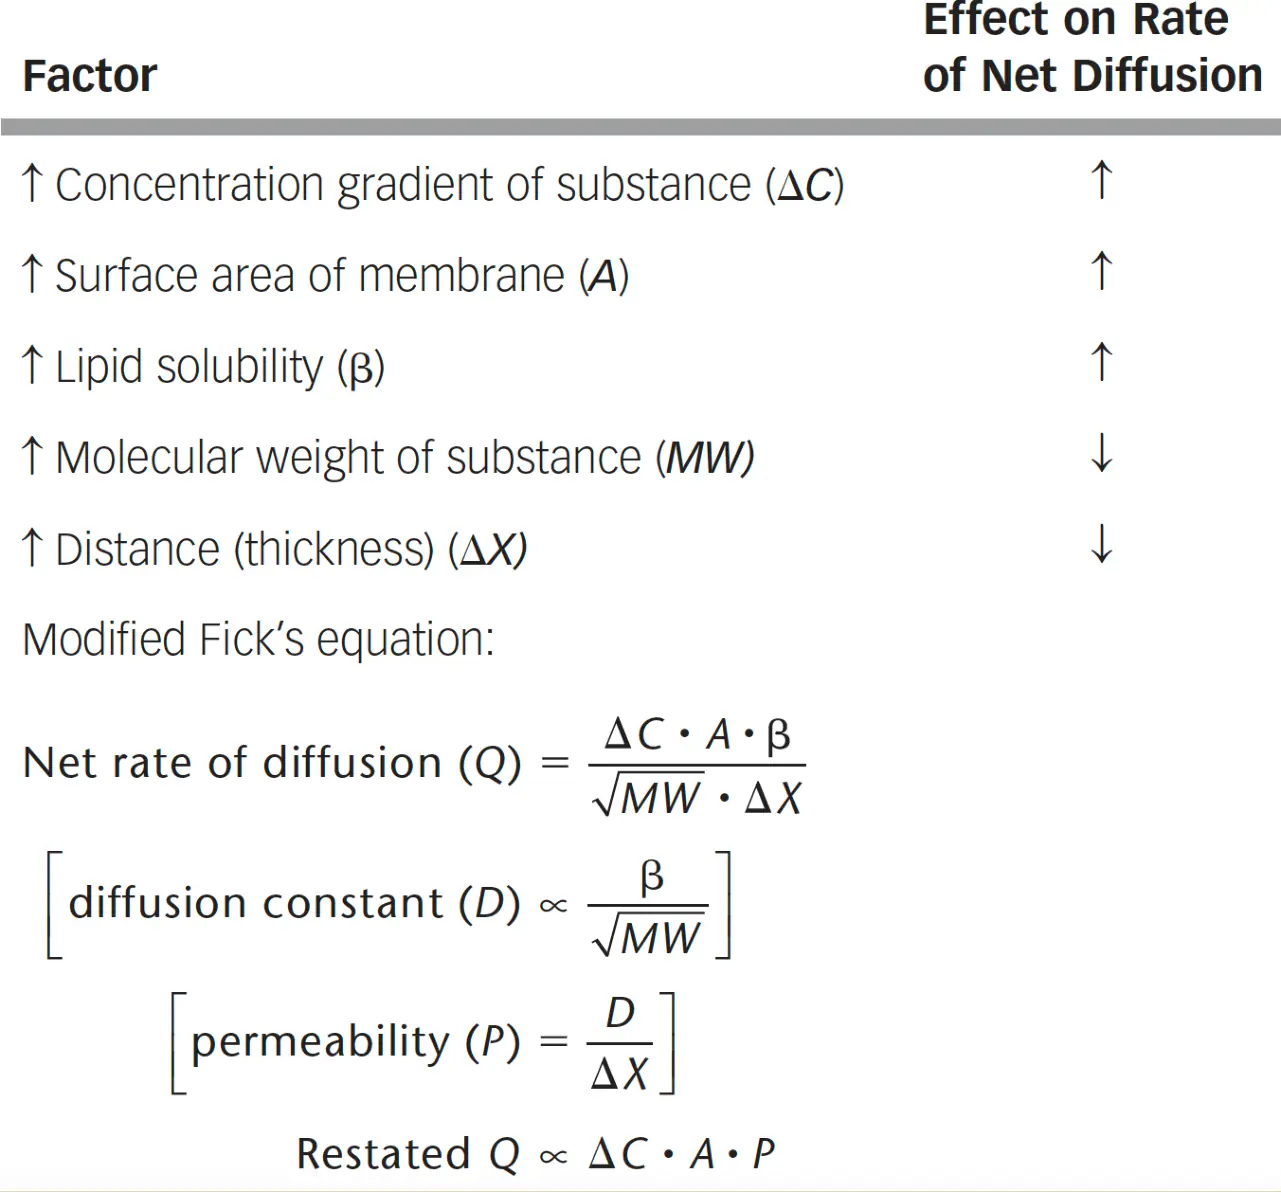
Konsantrasyon gradyanı büyüdükçe bir taraftan diğerine geçiş farkı artar. Egzersizde artan CO₂ üretimi ile akciğere taşınan CO₂ yükü örneği bu ilk etkiyi sezdirir. Yüzey alanı büyüdükçe aynı birim alan başına akı devam etse de toplam geçen miktar yükselir. İnce bağırsak mikrovillusları besin emilim yüzeyini artırır; bu alan örneği, membranın yapısı ile fizyolojik verim arasındaki doğrudan ilişkidir. Lipid çözünürlüğü arttığında hidrofobik çekirdekte ilerlemek kolaylaşır; bazı hormonlar ve gazlar için bunun önemi vardır. Buna karşılık yüklü iyon için uygun kanal varsa geçişi kanalın seçiciliği belirler; yalnız lipid çözünürlüğüyle tüm difüzyon davranışı açıklanmaz.
Moleküler ağırlık/boyut arttıkça diğer şartlar eşitse difüzyon genellikle yavaşlar. Slaytın √MW ilişkisi basitleştirilmiş karşılaştırma içindir; gerçek zar geçirgenliğinde molekülün şekli ve kimyası da önemlidir. Mesafe/kalınlık arttıkça aynı gradyan daha uzun yola yayılır ve akı düşer. Akciğer alveol–kan arayüzünün ince oluşu gaz değişimini kolaylaştırır. Difüzyonun kısa mesafelerde etkin olması, dolaşım sisteminin maddeleri hücrelere kadar yaklaşacak şekilde taşımasının nedenidir. Büyük organlar arası uzaklıkları yalnız difüzyonla aşmaya çalışmak çok yavaş olurdu. Bu ayrım, kan akımı ile membran difüzyonunun birbirini tamamlayan ama farklı süreçler olduğunu gösterir.
Slayt 41'in özet şemasında membran geçirgenliği, lipid çözünürlüğü arttıkça ve moleküler boyut azaldıkça artar; lipid tabakanın kompozisyonu değişirse geçirgenlik de değişebilir. Bu görsel, slayt 37'nin değişkenlerini tek fizyolojik örneğe bağlar. Problem çözerken önce “diğer her şey sabit” varsayımını kurun. Örneğin yüzey alanı iki katına çıkar, ΔC aynı kalırsa toplam difüzyon eğilimi artar. Fakat aynı anda membran kalınlığı artmışsa iki etki yarışır; yalnız bir değişkeni okuyarak net sonucu söyleyemezsiniz.
| Değişken artarsa | Net difüzyon eğilimi | Ders örneği ve neden |
|---|---|---|
| Konsantrasyon farkı, ΔC | Artar | İki taraf arasındaki net yönlü geçiş farkı büyür |
| Yüzey alanı, A | Artar | Mikrovilluslar toplam alışveriş alanını artırır |
| Lipid çözünürlüğü, β | Artar | Hidrofobik tabakadan geçiş kolaylaşır |
| Molekül ağırlığı, MW | Azalır | Daha büyük/ağır parçacığın yayılması yavaşlar |
| Difüzyon mesafesi, ΔX | Azalır | İnce alveol–kan bariyeri gaz alışverişine elverişlidir |
- Geçen madde ve geçirilebilir yolunu saptayın.
- ΔC, A, lipid çözünürlüğü, MW ve ΔX değişkenlerini tek tek işaretleyin.
- Her değişkenin akıyı artıran veya azaltan yönünü tabloya göre okuyun.
- Birden çok değişken değişiyorsa etkileri birlikte tartın; denge varsa net akıyı sıfır kabul edin.
Dinamik dengede moleküller iki yönde geçiş yapar; net akı sıfırdır. “Hiç geçiş yok” ifadesi dengeyi yanlış açıklar.
Slayt 36'daki hücre içi protein örneği, yüksek derişimden düşüğe gitme eğiliminin tek başına membranı aşmaya yetmediğini gösterir.
Akciğer hava–kan arayüzünde kısa difüzyon mesafesi O₂ ve CO₂ alışverişini kolaylaştırır; mesafe artışı, aynı gradyan ve alan korunurken akıyı azaltır.
Dinamik dengede moleküller tamamen durur mu?
Hayır; iki yöndeki ortalama geçiş eşitlenir, net akı sıfırlanır.
Fick yaklaşımında alan iki katına çıkarsa diğerleri sabitken toplam akı ne yönde değişir?
Artar; daha geniş yüzey geçişe katılır.
Slayt 37'de artan membran kalınlığı net difüzyonu nasıl etkiler?
Difüzyon mesafesi arttığı için azaltır.
İntrasellüler büyük bir protein neden derişim farkına rağmen basit difüzyonla dışarı çıkmaz?
Membran ona geçirgen bir yol sağlamaz.
Molekül ağırlığı ile lipid çözünürlüğünün slayttaki etkileri hangi yöndedir?
Ağırlık artışı akıyı azaltır; lipid çözünürlüğü artışı artırır.
5. Osmoz, ozmolarite ve tonisite
Kaynak slaytlar: 42–53
5.1 Su hareketinin mekanizması
Osmoz (osmosis), suyun seçici geçirgen membran boyunca net hareketidir. Suyun serbest derişimi daha yüksek olan, yani etkili çözünmüş madde derişimi daha düşük olan taraftan; suyun serbest derişimi daha düşük olan tarafa net geçiş eğilimi vardır. Slayt 42'de “su derişimi çözünen derişimiyle ters ilişkilidir” cümlesi bu yönü öğretir. Su iki yönde rastgele hareket etmeyi sürdürür; osmoz iki yöndeki akıların farkıdır. Aquaporinler suya özgül kanallar olup geçiş hızını belirgin artırır. Lipid çift tabakadan su yavaş geçebilse de aquaporin varlığı, hücrenin suya gerçek geçirgenliğinde büyük fark yaratır.
Osmozu anlamak için çözünen maddenin de membrandan geçip geçmediğini sorun. Su geçer, çözünen madde geçmezse farklı çözünen derişimleri kalıcı bir osmotik etki yaratabilir. Her ikisi de serbestçe geçiyorsa çözünen madde de yayılır; başlangıçtaki su akışı, hücre hacmini kalıcı olarak belirleyen “geçmeyen madde” etkisi gibi yorumlanamaz. Slayt 42'nin üst sağ görseli iki maddeye de geçirgen membran içerir, slayt 44 ise suya geçirgen, çözünene geçirgen olmayan membranı gösterir. Bu iki şeklin amacı aynı değildir; tonisite sorularında slayt 44'teki seçici geçirgen durum esas alınır.
Osmotik basınç, suyun çözüneni daha yoğun tarafa geçme eğilimini durdurmak için gerekli karşı basınçtır. Slayt 44'te çözünene geçirgen olmayan ayırıcı boyunca su sağ tarafa ilerledikçe sağdaki sıvı sütunu yükselir. Yükselen sütunun hidrostatik basıncı osmotik eğilime karşı koyar. Bir noktada iki etki dengelenir ve net su akımı durur; moleküler geçişler yine sürer. Slayt 46'nın U borusu çiziminde pistona uygulanan karşı kuvvet, bu kavramı başka bir yoldan gösterir. “Çeken basınç” ve “iten basınç” sözcükleri, iki tarafı karıştırmamak için kullanılabilecek basitleştirmelerdir; fiziksel yorumda suyun kimyasal potansiyeli ve basınç farkı birlikte belirleyicidir.
5.2 Ozmolarite ile osmotik basınç aynı ölçü değildir
Ozmolarite (osmolarity) bir litre çözeltide bulunan osmotik etkin parçacıkların sayısal derişimidir; birimi Osm/L veya mOsm/L'dir. Bir mol glukoz çözünürse ideal yaklaşımla bir mol parçacık verir, yani yaklaşık 1 osmole katkı yapar. Bir mol NaCl, Na⁺ ve Cl⁻ olarak ayrıştığından ideal yaklaşımla yaklaşık 2 osmole karşılık gelir. Buradaki kilit sözcük parçacık sayısıdır; gram miktarı veya kimyasal ad tek başına ozmolariteyi vermez. Slayt 45, vücut sıvıları için yaklaşık 300 mOsm/L değeri verir. Bunu bağlama bağlı yaklaşık değer olarak öğrenin; bir çözeltinin hücreye karşı tonik etkisini yalnız toplam ozmolariteden çıkarmazsınız.
Osmotik basınç, net osmotik akışı durdurmak için gereken basınç olarak farklı bir niceliktir ve çözünmeyen/zarından geçmeyen parçacıkların etkisini yansıtır. Aynı parçacık sayısına sahip iki çözelti farklı zarlara karşı farklı etkin osmotik basınç gösterebilir; çünkü bir çözünen bir zardan geçebilirken başka zardan geçmeyebilir. Ozmolariteyi “çözeltide kaç parçacık var?”, tonisiteyi ise “bu parçacıklardan hangileri hücre zarını geçemiyor ve hücre hacmini nasıl değiştiriyor?” sorusu olarak kurun. Böylece izotonik ile izo-ozmotik sözcüklerini otomatik eşitlemezsiniz.
5.3 Tonicity hücre hacminin dilidir
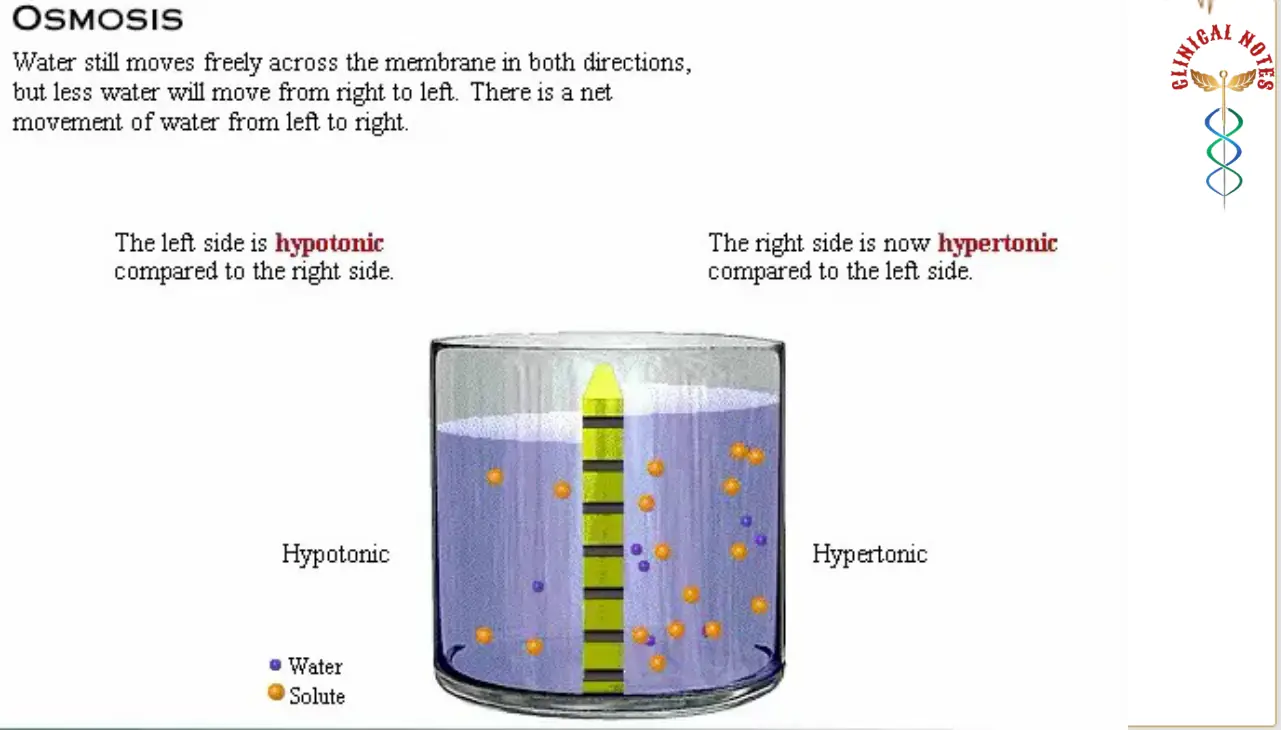
Bir osmoz çiziminde suyun yönünü bulmak için kabın geometrisine, okların uzunluğuna veya sağ–sol konumuna güvenmeyin. Önce zarın suya geçirgen olup olmadığını, sonra hangi çözünenlerin zarı geçemediğini belirleyin. Geçmeyen çözünen daha yoğun olan taraf, suyun net yönünü çeker; fakat su biriktikçe gelişen hidrostatik basınç karşı etki yaratabilir. Bu nedenle aynı şeklin “başlangıçtaki hareket” ve “son denge” aşamaları farklı sorulara yanıt verir. Slayt 42'de çözünenin de geçebildiği panel ile slayt 44'te çözünenin geçemediği paneli ayırmak özellikle önemlidir. İlk durumda çözünen farkı zamanla çözünenin kendi difüzyonuyla azalabilir; ikinci durumda fark devam edebilir ve suyun hacim üzerindeki etkisi belirginleşir. Bu gözlem, neden tonisitenin toplam parçacık sayısından çok geçmeyen parçacıkların etkisi olarak tanımlandığını açıklar.
Tonicity (tonisite), hücre dışındaki geçmeyen çözünenlerin hücre hacmini hangi yönde değiştireceğini anlatır. İzotonik çözeltide ECF'nin etkili geçmeyen çözünen derişimi hücre içiyle dengelidir; iki yöne su geçse de net hacim değişimi beklenmez. Hipotonik ECF'de etkili dış çözünen daha azdır; su hücreye girer, hücre şişer ve aşırı durumda parçalanabilir (lysis). Hipertonik ECF'de dış etkili çözünen daha fazladır; hücre su kaybeder ve küçülür. Eritrositte bu büzüşmüş, dikenimsi görünüm crenation olarak adlandırılır. Slayt 49–51'deki üçlü ayrım, ezberden çok suyun hangi tarafa net geçeceğini çıkararak öğrenilmelidir.
Hipotonik duruma aşırı su alımıyla ECF'nin seyrelmesi, hipertonik duruma ciddi su kaybı örnek verilir. Bu örneklerde klinik tabloyu yalnız tek olay belirlemez; dersin hedefi yön ilişkisini göstermektir. Beyin hücrelerinin hacim değişimine duyarlı olması, osmozun yalnız mikroskobik bir olay olmadığını öğretir. Şişme veya büzüşme hücre işlevini bozabilir. İntravenöz (IV) sıvılar bu nedenle hücre hacmi yönünden dikkatle seçilir. Slayt 52'de %0,9 NaCl (serum fizyolojik) izotonik infüzyon örneğidir; normal hücre hacmini belirgin değiştirmeden ECF/plazma hacmini desteklemek için kullanılır. Genel öğretim kuralı, uygunsuz hipotonik veya hipertonik sıvının hücre hacmini istenmeyen biçimde değiştirebileceğidir. Klinik seçim ise hastanın durumuna bağlıdır; slayttaki “genellikle izotonik” ifadesi tek tedavi seçeneği olarak okunmamalıdır.
ECF homeostazı, geçmeyen çözünenlerin yoğunluğunu ve dolayısıyla hücre hacmini korumaya yöneliktir. Slayt 52'deki yaklaşık 300 mOsm/L eşleşme ifadesi hücre–ECF su dengesini çerçeveler. Ancak “eşit toplam ozmolarite” ile “hacim değişimi yok” her durumda özdeş değildir; zarın hangi maddeye geçirgen olduğu belirleyicidir. Slayt 47'nin iki taraflı su/çözünen animasyon karesi ile slayt 53'ün hipotonik soldan hipertonik sağa net su akışı, moleküllerin iki yönde hareket ederken net akının tek yönde olabileceğini görselleştirir. Slayt 50'de hücre şişmesi, 51'de eritrosit büzüşmesi bu net hareketin hücre ölçeğindeki sonucudur.
| Ortam | Dıştaki geçmeyen çözünen | Net su hareketi | Hücre sonucu |
|---|---|---|---|
| İzotonik | İçeriyle etkili dengede | Net yok | Hacim korunur |
| Hipotonik | Daha düşük | Hücre içine | Şişme, aşırıysa lizis |
| Hipertonik | Daha yüksek | Hücre dışına | Büzüşme; eritrositte crenation |
- Hücre zarını geçmeyen dış ve iç çözünenleri belirleyin.
- Etkili derişimi karşılaştırın; yalnız “toplam partikül sayısı”na bakmayın.
- Su, geçmeyen çözünenin daha yoğun olduğu yöne net ilerler.
- Hücreye giriş şişme, hücreden çıkış büzüşme; denge hacmin korunması demektir.
Ozmolarite bütün çözünen parçacıkları sayar; tonisite hücre hacmine etkili geçmeyen parçacıklara odaklanır.
İzotonik ortamda su iki yönde geçmeye devam eder. Yalnız net giriş ve çıkış dengelenir; hücre hacmi değişmez.
Slayttaki %0,9 NaCl örneği, hacim etkisi düşünülerek sıvı seçilmesi gerektiğini gösterir. Beyin hücreleri su dengesindeki belirgin değişikliklerden özellikle etkilenebilir.
Hipo → hücreye su → şişme; hiper → hücreden su → büzüşme; izo → net hacim değişmez. Yönü daima hücrenin dışındaki ortamın tonisitesine göre adlandırın.
Aquaporinin temel etkisi nedir?
Membran boyunca su geçiş hızını artırır.
Bir mol glukoz ve ideal ayrışan bir mol NaCl yaklaşık kaç osmole katkı verir?
Glukoz 1, NaCl 2 osmole.
Tonicity neden yalnız toplam ozmolariteden çıkarılamaz?
Hücre zarını geçip geçmeyen çözünenlerin hacim etkileri farklıdır.
Hipertonik ECF'de eritrosit nasıl değişir?
Su kaybedip büzüşür; crenation görülebilir.
Osmotik akışı durduran karşı kuvvet hangi basınçla ilişkilidir?
Su birikimiyle oluşan karşı hidrostatik basınçla.
6. Taşıyıcı aracılı ve kolaylaştırılmış taşınma
Kaynak slaytlar: 54–61
6.1 Neden taşıyıcı gerekir?
Glukoz ve amino asitler gibi polar, lipidde zor çözünen bazı maddeler çift tabakadan yeterli hızda geçemez; uygun kanaldan geçişleri de molekül boyutu ve kanal seçiciliği nedeniyle mümkün olmayabilir. Hücre taşıyıcı aracılı taşınma (carrier-mediated transport) ile bu maddeleri özgül biçimde aktarır. Slayt 54, bunun küçük–orta boy suda çözünen maddeler için, veziküler taşınmanın ise büyük moleküller ve çok moleküllü parçacıklar için kullanıldığını söyler. Aynı slaytta proteinlerin taşıyıcıyla geçen örnekler arasında sayılması bu ayrımla çelişir; büyük intakt proteinlerin genel yolu veziküler süreçlerdir. Bu belirsizlik son bölümde kaynakla işaretlenmiştir. Böylece “polar” olmak tek başına taşıyıcı kullandırmaz: boyut ve biyolojik kargonun yapısı da önemlidir.
Bir taşıyıcı döngüsünde önce bağlanma yüzü ECF'ye bakar; uygun molekül bağlanır; protein konformasyon değiştirerek bağlanma yerini ICF'ye açar; madde bırakılır ve taşıyıcı başlangıç durumuna döner. Slayt 55'in dört adımı, maddelerin membranda açık bir delikten topluca akması ile taşıyıcının her döngüde biçim değiştirerek çalışması arasındaki farkı görünür kılar. Döngü aynı yönde pasif çalışabilir veya enerji bağlı bir mekanizmada gradyana karşı kullanılabilir. Bu yüzden “taşıyıcı” ile “aktif” eş anlamlı değildir; taşıyıcının hangi kuvvetle çalıştığı ayrıca sorulur.
6.2 Özgüllük, doygunluk ve rekabet
Taşıyıcı sistemlerin üç belirgin özelliği özgüllük, doygunluk ve rekabettir. Özgüllük, belirli bir taşıyıcının belirli maddeyi veya yakın benzerlerini tanımasıdır; glukoz ile amino asidin aynı genel “polar besin” kümesinde olması tek taşıyıcı paylaşmaları anlamına gelmez. Slayt 56'nın cystinuria örneği, kusurlu taşıyıcının fizyolojik sonuç doğurabileceğini vurgular. Bu durumda klinik ilişkiyi “spesifik taşıyıcı bozukluğu belirli maddenin işlenmesini bozar” ilkesi olarak öğrenin; slayt ayrıntılı genetik mekanizma vermez.
Doygunluk, taşıyıcı sayısı ve döngü hızının sonlu olmasının sonucudur. Düşük madde derişimlerinde derişim arttıkça akı da yükselir; taşıyıcıların çoğu çalışır hâle geldiğinde hız bir üst sınıra yaklaşır. Bu sınıra slayt taşıma maksimumu (Tm) der. Basit lipid difüzyonuyla karşılaştırıldığında belirli bir taşıyıcının ölçülebilir doygunluk davranışı ayırt edicidir. Rekabet ise benzer moleküllerin aynı taşıyıcının bağlanma yerini paylaşmasıyla her birinin taşıma hızının düşebilmesidir. Her iki kavram da “protein var mı?” sorusunun ötesine geçer: protein ne kadar var, ne kadar hızlı dönüyor, hangi alternatif maddelerle meşgul?
Slayt 57, insülinin GLUT4 taşıyıcılarının hücre yüzeyindeki sayısını artırarak glukoz alımını yükseltebildiğini belirtir. Bunu Tm'nin yalnız tek proteinin doğal hızı değil, yüzeyde çalışan taşıyıcı sayısıyla da ilişkili olduğunu göstermek için kullanın. GLUT4'ü bütün hücrelerdeki tek glukoz taşıyıcısı sanmayın; slayt bunu belirli bir fizyolojik örnek olarak verir. Slayt 58'in ilaç taşınması, metabolik hastalıklar, besin alımı ve atık uzaklaştırma bağlantıları, özgüllük–rekabet–doygunluğun klinik uygulamasını açıklar: aynı taşıyıcıyı paylaşan maddeler birbirinin net taşınmasını etkileyebilir.
6.3 Kolaylaştırılmış difüzyon: proteinli ama pasif
Taşıyıcı aracılı mekanizmalar arasında kolaylaştırılmış difüzyon (facilitated diffusion) ve aktif taşıma vardır. Slayt 59–60'taki “yokuş aşağı–yokuş yukarı” benzetmesi önemli: kolaylaştırılmış difüzyon, maddeyi yüksek derişimden düşük derişime, ATP harcamadan taşır. Protein bulunması onu aktif yapmaz. Taşıyıcı, polar maddenin lipid çekirdeğinde karşılaşacağı engeli aşmasına uygun bir yol sunar; hareketin net yönünü konsantrasyon farkı belirler. Örnek olarak glukoz kandan hücreye doğru hareket ederken glukoz taşıyıcıları (GLUTs) kullanılır. Hücre glukozu metabolize ettikçe serbest hücre içi glukoz düzeyinin düşük tutulması, giriş için farkın sürmesine yardım eder.
İncelik şudur: kolaylaştırılmış difüzyonun kendisi ATP harcamaz; fakat hücrenin glukozu kullanması gibi başka süreçler gradyanın devamına katkı verebilir. Bu, taşıyıcının enerji tükettiği anlamına gelmez. Slayt 61 glukozun boyut ve polarite nedeniyle membranı kendi başına yeterli ölçüde geçemediğini, GLUT'un bu nedenle besin erişimi için gerekli olduğunu söyler. Ayrıca hücreye yakıt sağlama işlevini vurgular. “Her glukoz geçişi kolaylaştırılmış difüzyondur” genellemesini bir sonraki bölümdeki Na⁺–glukoz symport örneği bozacaktır: aynı madde farklı membranlarda farklı mekanizmayla taşınabilir.
| Özellik | Basit lipid difüzyonu | Kanal üzerinden pasif akış | Taşıyıcıyla kolaylaştırılmış difüzyon |
|---|---|---|---|
| Protein gerekir mi? | Hayır | Evet, kanal | Evet, taşıyıcı |
| Maddenin yolu | Lipid çift tabaka | Sulu gözenek | Bağlanma–konformasyon döngüsü |
| Doğrudan ATP | Hayır | Hayır | Hayır |
| Taşıyıcı Tm/doygunluğu | Yok | Taşıyıcı Tm mantığı yok | Var |
| Tipik örnek | O₂, CO₂ | Na⁺, K⁺ için uygun kanal | GLUT aracılı glukoz |
- ECF'de serbest glukoz, ilgili hücre içi serbest glukoza göre yüksekse elverişli gradyan oluşur.
- Glukoz, özgül GLUT taşıyıcısına bağlanır.
- Taşıyıcının şekli değişir; glukoz iç tarafa salınır.
- Taşıyıcı yeniden kullanılabilir; ATP bu geçiş döngüsünün doğrudan yakıtı değildir.
Taşıyıcı aynı yapısal araçtır; kolaylaştırılmış difüzyon pasif, aktif taşıma enerji bağlantılı olabilir.
Derişim farkı büyüse de bütün taşıyıcılar doluysa akı üst sınıra yaklaşır. Tm, “gradyan kalmadı” değil, taşıyıcı kapasitesi sınırlı demektir.
Slayttaki taşıyıcı kusuru örneği, seçici bir membran proteininin bozukluğunun belirli madde akışını etkileyebileceğini gösterir; mekanizmayı özgüllük kavramıyla ilişkilendirin.
Taşıyıcı aracılı taşınmanın üç ayırt edici özelliği nedir?
Özgüllük, doygunluk ve benzer maddeler arasında rekabet.
Tm neyi ifade eder?
Taşıyıcı sistemin doygunluğa ulaştığındaki yaklaşık en yüksek taşıma kapasitesini.
Kolaylaştırılmış difüzyonun enerji ve yön özelliği nedir?
ATP harcamadan, maddenin elverişli gradyanı yönünde gerçekleşir.
GLUT4 sayısının artması glukoz alımını neden artırabilir?
Membranda çalışan glukoz taşıyıcısı sayısı ve toplam kapasite artar.
Büyük, intakt protein genel olarak hangi taşıma sınıfına daha uygundur?
Veziküler taşınmaya; küçük/orta polar çözünen için taşıyıcı uygundur.
7. Birincil ve ikincil aktif taşıma
Kaynak slaytlar: 62–71
7.1 Enerji ile “yokuş yukarı” hareket
Aktif taşıma (active transport), bir maddenin kendi konsantrasyon veya elektrokimyasal gradyanına karşı net taşınmasını mümkün kılar. Böyle bir hareket kendiliğinden elverişli olmadığı için enerji bağlantısı gerekir. Birincil aktif taşımada taşıyıcı ATP'yi doğrudan parçalar ve çıkan enerjiyle iyonu taşır. İkincil aktif taşımada taşınan maddenin taşıyıcısı ATP'yi doğrudan parçalamaz; ATP kullanan birincil pompanın kurduğu iyon gradyanında depolanmış enerjiyi kullanır. “İkincil” sözcüğü enerji gerekmiyor demek değildir; enerji harcaması bir önceki basamaktadır. Slayt 62–63'teki yokuş benzetmesini, hem kuvvet hem enerji kaynağı yönünden bu farkla birlikte okuyun.
Slayt 63'ün üçlü resmi aynı membranda üç ayrı mantığı yan yana koyar: GLUT ile glukoz gradyanı yönünde kolaylaştırılmış difüzyon; Ca²⁺-ATPaz ile ATP kullanarak Ca²⁺ taşıma; Na⁺ gradyanı ile Ca²⁺'yi zıt yönde hareket ettiren Na⁺–Ca²⁺ değiştiricisi. Bu karşılaştırma, taşınan maddenin adından mekanizmayı otomatik çıkarmamayı öğretir. Bir madde için asıl soru hangi protein ve hangi enerji eşleşmesiyle geçtiğidir.
7.2 Na⁺/K⁺-ATPaz döngüsü
Na⁺/K⁺-ATPaz (sodium–potassium pump), slayt 64–65'te birincil aktif taşımanın ana örneğidir. Hücre içinden 3 Na⁺'ı dışarı, dışarıdan 2 K⁺'ı içeri taşır; her ikisi de kendi derişim gradyanına karşı hareket eder. Döngüde ATP parçalanır ve pompaya fosfat bağlanması konformasyon değişimiyle ilişkilidir. İç yüze açık durumda Na⁺ bağlanma eğilimi yüksektir. Üç Na⁺ bağlandıktan sonra fosforilasyon pompayı dış yüze açık duruma geçirir; Na⁺ afinitesi azalır ve iyonlar ECF'ye bırakılır. Dış yüzde iki K⁺ bağlanır; defosforilasyon sonrasında yapı yeniden iç yüze açılır ve K⁺ ICF'ye salınır. Pompa tekrar Na⁺ bağlamaya hazır olur.
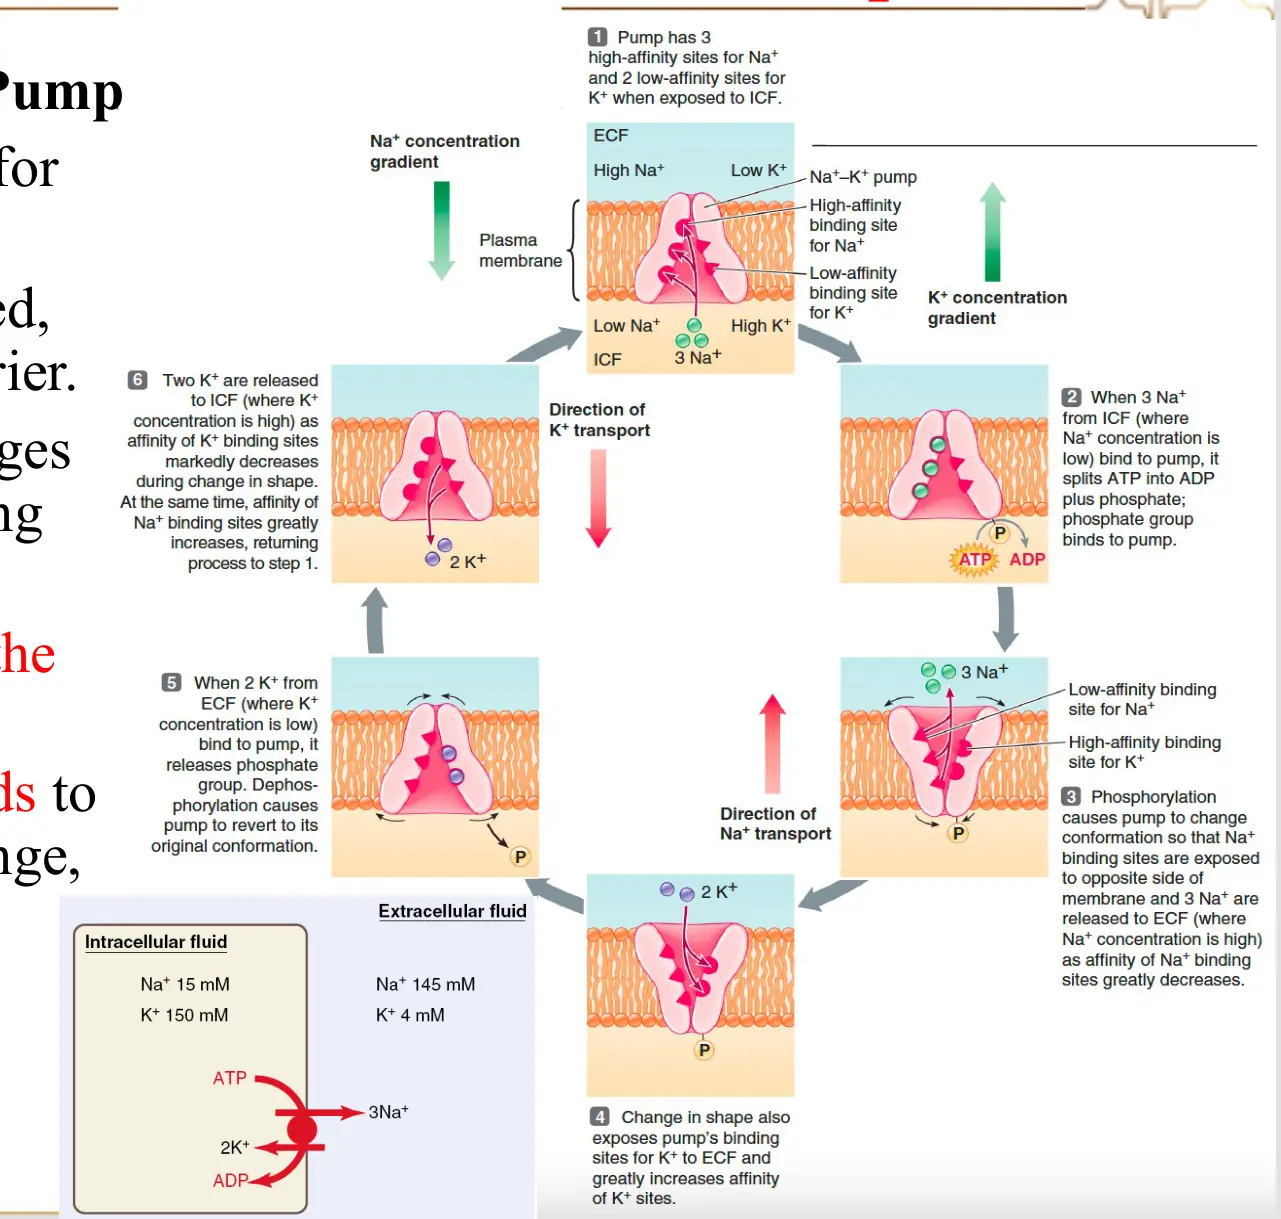
Bu döngüde iki ayrımı aynı anda tutun. Birincisi, pompanın konformasyon değişimi taşıma için gereklidir; iyonlar lipid tabakayı doğrudan çözünerek geçmez. İkincisi, “ATP bir Na⁺'ı iter” gibi mekanik bir itme yoktur; ATP'nin hidrolizi protein üzerinde bağlı durumların ve iyon afinitelerinin değişmesine bağlanır. Üç Na⁺ ve iki K⁺ stokiyometrisi, her döngüde bir net pozitif yükün dışarı taşınması anlamına gelir; bu nedenle pompa elektrojendir. Ancak slaytın ana vurgusu doğrudan potansiyel üretiminden çok Na⁺ ve K⁺ gradyanlarının sürdürülmesidir. Bu gradyanlar sinir ve kas işlevi, hücre hacmi ve ikincil aktif taşıma için kaynak oluşturur.
Slayt 65–66 yaklaşık örnek derişimler de gösterir: ICF'de Na⁺ 15 mM ve K⁺ 150 mM; ECF'de Na⁺ 145 mM ve K⁺ 4 mM. Bu sayıları değişmez bütün hücre değerleri olarak değil, yön ve büyüklük farkını gösteren öğretim örnekleri olarak kullanın. Na⁺ pompalanarak içeride görece düşük tutulduğu için dışarıdan içeri Na⁺ girişi başka bir maddeyi taşımak için enerji kaynağı olabilir. Slayt 66 pompanın üç rolünü sıralar: iyon gradyanı, hücre hacmi kontrolü ve ikincil aktif taşımanın enerji kaynağı. Ayrıca insan bedeninin toplam enerji tüketiminin yaklaşık %20'sini kullandığı tahminini verir; bu sayı koşul ve dokuya bağlı bir yaklaşık değer olarak yorumlanmalıdır.
Ca²⁺ pompaları, slayt 67'de diğer birincil aktif taşıma örneğidir. Ca²⁺'yi hücre dışına veya endoplazmik/sarkoplazmik retikuluma taşıyarak sitozolik Ca²⁺ düzeyinin düzenlenmesine katkı verir. Nöronda nörotransmitter salınmasının Ca²⁺ ile bağlantısı nedeniyle bu kontrol önemlidir. Pompa ile kanalın yönünü karıştırmayın: bir Ca²⁺ kanalı açılınca iyon mevcut elektrokimyasal gradyanına göre hızla akabilir; Ca²⁺-ATPaz ise ATP ile gradyana karşı düzenleme yapabilir. Slaytın nöronal işlev bağı, iyonun anlık sinyal rolü ile daha sonra dengenin yeniden kurulması arasındaki bağı kurar.
7.3 Na⁺ gradyanıyla eşlenmiş taşıma
Na⁺/K⁺ pompasının işini, kanalların işinden ayrı ama bağlantılı düşünün. Pompa ATP tüketerek Na⁺'ı içeride düşük, K⁺'ı içeride yüksek tutar. Açık bir iyon kanalı bu mevcut farkın belirlediği yönde pasif akışa izin verir; kanal pompanın yaptığı işi yinelemez. İyon akışı gradyanı azaltma eğilimindeyken pompa onu sürdürmeye çalışır. Aynı ayrım Ca²⁺ için de geçerlidir: Ca²⁺-ATPaz sitozolik düzeyin denetlenmesinde rol alır, uygun kanal üzerinden Ca²⁺ akışı ise hızlı bir sinyal olayının parçası olabilir. Böyle bakınca “hücre neden hem pompa hem kanal taşır?” sorusunun yanıtı belirginleşir: biri potansiyel enerji oluşturan ve dengeyi geri kuran süreçtir, diğeri bu enerjinin kontrollü kullanılmasına olanak tanır. Slayt 63'te yan yana verilen GLUT, Ca²⁺-ATPaz ve Na⁺–Ca²⁺ değiştirici çizimleri de proteinlerin sırf membrana gömülü olmalarına bakarak aynı enerji sınıfına konamayacağını gösterir.
İkincil aktif taşıma, slayt 68–69'da Na⁺ gradyanının “depolanmış enerji” olarak kullanılmasıyla açıklanır. Eşlenmiş taşıyıcının Na⁺ ve taşınacak çözünen için bağlanma bölgeleri vardır. Na⁺ kendi elverişli gradyanı yönünde hareket ederken başka çözünenin elverişsiz hareketini sürükler. Bu mekanizmada enerji, aynı taşıyıcının ATP hidrolizinden değil, pompanın daha önce kurduğu gradyandan gelir. Pompa durmuş ve Na⁺ gradyanı zamanla kaybolmuşsa ikincil taşımanın itici gücü de azalır. Dolayısıyla ikincil taşıyıcının bağımlılığını görmek için ona ATP bağlanıyor mu diye değil, onu besleyen gradyan nasıl kuruluyor diye bakın.
Symport/cotransport, iki maddenin aynı yönde; antiport/counter-transport, zıt yönlerde taşınmasıdır. Slayt 70–71'in örnekleri arasında Na⁺–glukoz ve Na⁺–amino asit symportu, Na⁺–H⁺ ve Na⁺–Ca²⁺ antiportu vardır. Görsel ayrıca Na⁺–K⁺–2Cl⁻ (NKCC), Na⁺–Cl⁻ (NCC), Na⁺–fosfat (NaPi), H⁺–peptid (PepT) ve Cl⁻/HCO₃⁻ değişimi gibi eşlenmiş yolları gösterir. Her birini aynı “Na⁺ içeri girer” kalıbına zorlamayın; örneğin H⁺–peptid symportu Na⁺ yerine H⁺ gradyanını kullanır. Taşıyıcının adı, birlikte hareket eden maddeleri ve yön ilişkisini okumak için ipucudur. Slayt 56 ve 68'deki proksimal tübül çizimi, apikal tarafta Na⁺ ile glukoz/amino asit/fosfat taşınmasını, bazolateral tarafta Na⁺/K⁺ pompasını ve çözünenlerin kana çıkışını yan yana gösterir. Bu, enerji zincirinin doku düzeyindeki örneğidir.
| Mekanizma | Enerjinin yakın kaynağı | Tipik yön düzeni | Slayt örneği |
|---|---|---|---|
| Kolaylaştırılmış difüzyon | Maddenin kendi gradyanı | Yüksekten düşüğe | GLUT ile glukoz |
| Birincil aktif taşıma | ATP hidrolizi | Taşınan iyon gradyanına karşı | Na⁺/K⁺-ATPaz, Ca²⁺-ATPaz |
| İkincil aktif symport | Sürükleyici iyon gradyanı | İki madde aynı yönde | Na⁺–glukoz, H⁺–peptid |
| İkincil aktif antiport | Sürükleyici iyon gradyanı | İki madde zıt yönde | Na⁺–H⁺, Na⁺–Ca²⁺ |
- Na⁺/K⁺-ATPaz ATP kullanıp 3 Na⁺'ı dışarı, 2 K⁺'ı içeri taşır.
- Böylece Na⁺ dışarıda yüksek, içeride görece düşük kalır.
- Na⁺ içeri dönmeye eğilimli olduğunda eşlenmiş taşıyıcı glukozu aynı yönde içeri alabilir.
- Glukozun bu basamağı dolaylı olarak pompanın daha önce harcadığı ATP'ye dayanır.
Na⁺/K⁺-ATPazın her döngüsünde 3 Na⁺ dışarı, 2 K⁺ içeri taşınır. İyon adını ve yönünü birlikte öğrenin.
Eşlenmiş taşıyıcı ATP'yi doğrudan parçalamaz; kullandığı Na⁺ gradyanı ATP kullanan pompa ile kurulmuştur.
Aynı epitel hücresinin bir yüzünde Na⁺ ile besin girişi, diğer yüzünde Na⁺/K⁺ pompası bulunması, taşıma yönünün hücre polaritesine göre örgütlendiğini gösterir.
Na⁺/K⁺-ATPaz bir döngüde kaç iyonu hangi yöne taşır?
3 Na⁺ hücre dışına, 2 K⁺ hücre içine.
Birincil ve ikincil aktif taşımada ATP ilişkisi nasıl ayrılır?
Birincil taşıyıcı ATP'yi doğrudan kullanır; ikincil taşıyıcı ATP ile kurulmuş iyon gradyanını kullanır.
Symport ve antiport arasındaki yön farkı nedir?
Symportta eşlenmiş maddeler aynı, antiportta zıt yönde taşınır.
Na⁺–glukoz symportu ile GLUT geçişi glukoz açısından nasıl ayrılır?
Symport Na⁺ gradyanıyla eşlenmiş ikincil aktif; GLUT elverişli glukoz gradyanı yönünde pasiftir.
Ca²⁺-ATPaz nereye Ca²⁺ taşıyabilir?
Hücre dışına veya endoplazmik/sarkoplazmik retikuluma.
8. Veziküler taşıma ve membran trafiği
Kaynak slaytlar: 72–75
8.1 Büyük kargo için membranla paketleme
Veziküler taşıma (vesicular transport), büyük polar molekülleri ve çok moleküllü parçacıkları bir lipid zarla çevrili kesecik içinde hareket ettirir. Bu kargo bir iyon kanalının seçici gözenek çapına veya küçük çözünen taşıyıcısının bağlanma yerine sığmaz. Hücre, membranını büküp kese oluşturur veya içerdeki keseyi yüzey membranıyla birleştirir. Vezikül oluşumu, hücre içinde taşınması ve füzyonu enerji gerektirir; bu yüzden slayt 72 aktif süreçler altında verir. Burada “aktif” sözcüğü her kargo molekülünün tek tek kendi derişim gradyanına karşı pompalandığı anlamına gelmez. Enerji membran trafiğinin fiziksel işine harcanır. Bu fark, taşıyıcı ve vezikül kavramlarının birbirine karışmasını önler.
Endositoz (endocytosis) dış ortamdan içeri alımdır: membran kargoyu sarar, içeri doğru çökerek vezikül oluşturur. Ekzositoz (exocytosis) içeriden dışarı salımdır: salgı vezikülü plazma membranıyla kaynaşır ve içeriğini ECF'ye açar. İki mekanizma, membranın bir tarafta içeri alınması ve öte tarafta eklenmesi yönünden de birbirini tamamlar. Sadece kargonun yer değiştirmesi değil, membran yüzeyindeki protein ve lipid bileşiminin düzenlenmesi de söz konusudur. Slayt 72'nin çift çizimi bu yönleri karşılaştırır.
8.2 Endositozun üç yolu ve son durakları
Pinositoz (pinocytosis), ECF'den küçük sıvı hacimlerinin ve içindeki çözünenlerin daha az seçici biçimde içeri alınmasıdır. Membran küçük bir cep oluşturur, sonra bu cep kapanıp vezikül olur. Reseptör aracılı endositoz, belirli bir kargonun yüzey reseptörüne bağlanmasıyla seçicilik kazanır; slayt 73'te reseptörlerin bir bölgede toplanması, klatrin kaplı çukurun içeri çökmesi ve hedef molekülü içeren vezikülün ayrılması gösterilir. Fagositoz (phagocytosis) ise bakteri veya hücre artığı gibi büyük parçacıkların psödopodlarla sarılmasıdır; oluşan veziküle fagozom denir. Slayt 73'te fagositozun eritrosit artığı ve beyaz kan hücresi görüntüleriyle gösterilmesi, yöntemin bağışıklık/temizlik bağlamını görünür kılar.
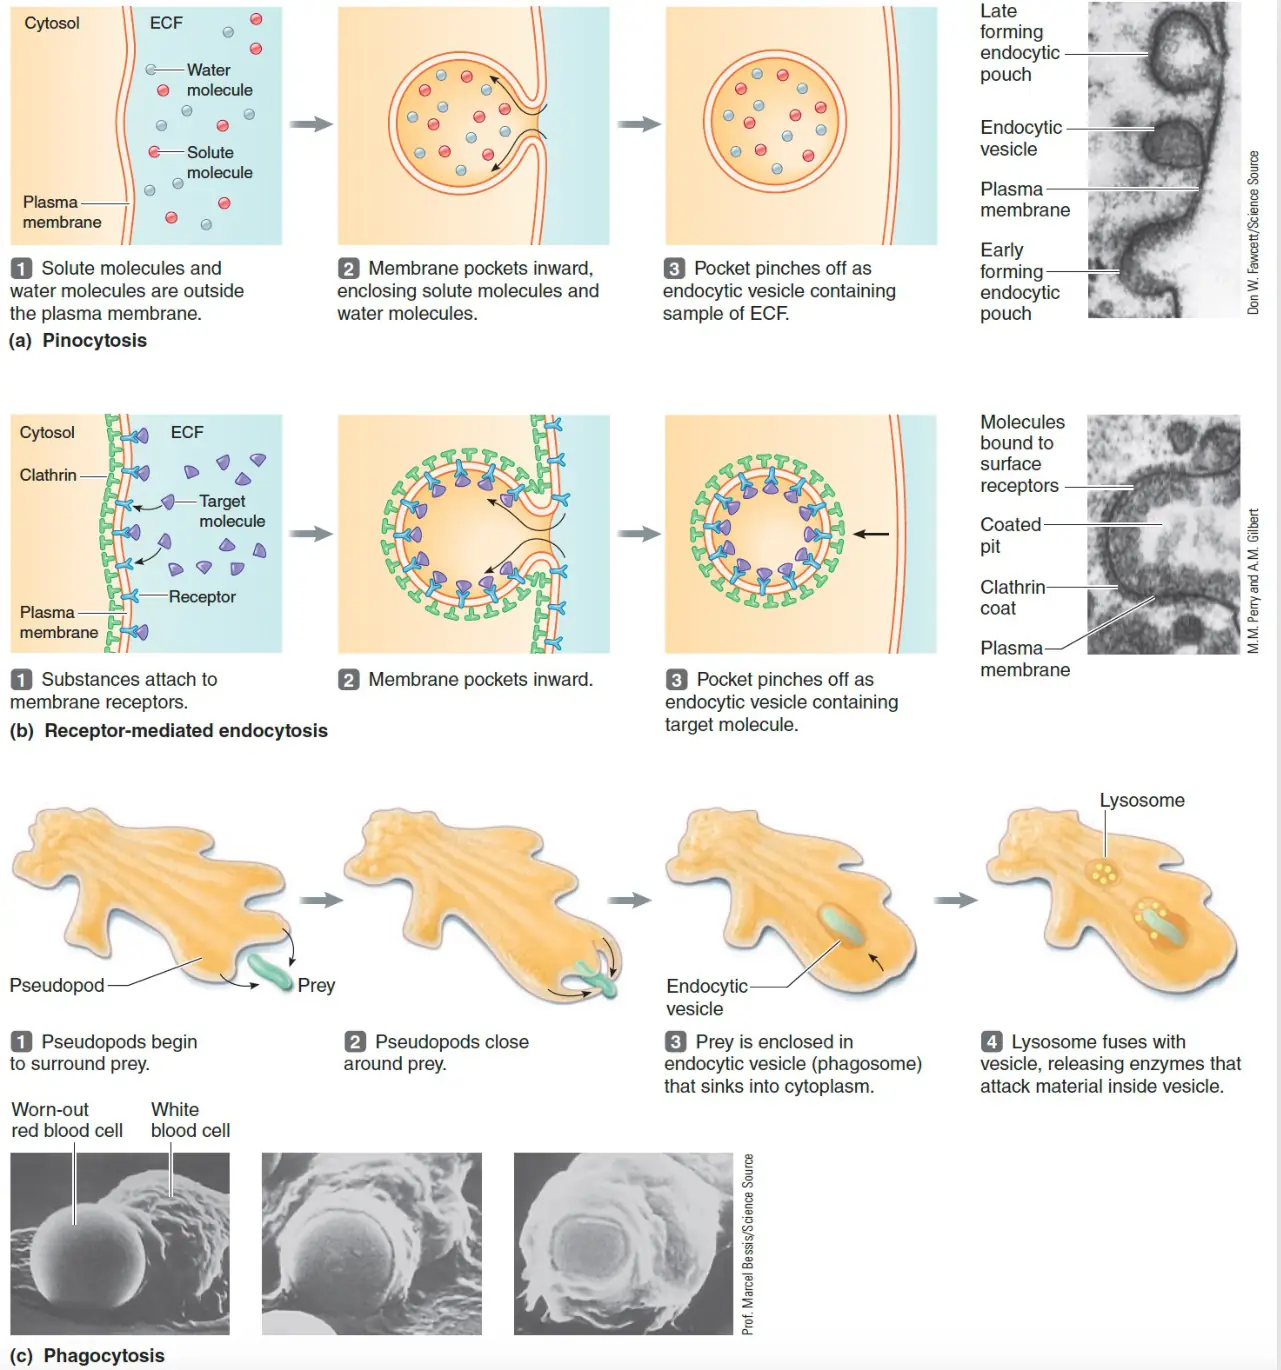
Endosite edilmiş veziküllerin kaderi tek tip değildir. Slayt 74'e göre çoğu endositoz kargosu lizozomal yıkım yoluna yönlendirilebilir; burada içerik enzimatik olarak parçalanır. Reseptör ve kaplama bileşenleri ise uygun süreçlerde geri dönüştürülebilir. Bazı veziküller transsitoz (transcytosis) yapar: hücrenin bir yüzünden alınan madde lizozomda yıkılmadan hücre boyunca taşınır ve diğer yüzünden bırakılır. Kapiller endotelde gösterilen transsitoz örneği, bir engeli “hücrenin içinden” aşan düzenli bir taşıma yoludur. Yıkım ile karşı taraftan bırakma aynı kader değildir; taşımanın amacını kargonun varış yeri belirler.
Slayt 74'te reseptörlü alımın ayrıntılı çizimi, ligandın reseptöre bağlanmasını, klatrin kaplı çukur/vezikül oluşmasını, kaplamanın geri dönüşünü, endozom–lizozom ilişkisini ve reseptörün yeniden yüzeye çıkabilmesini gösterir. Bu basamaklar “endozom” ile “lizozom”un aynı yapı olmadığını öğretir: endozom alınan kargonun ayrıştırıldığı ve yönlendirildiği trafik düğümüdür; lizozom yıkıcı enzimleriyle ilişkili son hedef olabilir. Slayt temel olarak lizozomal füzyon ve transsitozu adlandırsa da şekli okurken geri dönüşüm oklarını da hesaba katın.
8.3 Ekzositoz: salgı ve membranı yenileme
Ekzositozda hücre içindeki vezikül plazma membranına yaklaşır, uygun hedefe kenetlenir ve füzyon sonrası lümeni dış ortama açılır. Slayt 75 iki amacı açıkça verir: hormon, enzim gibi büyük/polar salgı ürünlerini dışarı bırakmak ve kanal, taşıyıcı, reseptör gibi belirli bileşenleri plazma membranına eklemek. İlk amaç kargo salımı, ikinci amaç membran bileşimini değiştirmedir. Böylece hücre yüzeyindeki protein sayısı, yalnız proteinin sentez hızına değil, yüzeye getirilmesine ve geri alınmasına da bağlı olur. Slayt 16–17'deki docking-marker/SNARE çizimiyle bu bölümün füzyon basamağını eşleştirin.
Salgı, nöronal veya hormonal bir uyarıyla tetiklenebilir. Slayt 77'nin özet tablosu, bazı salgı olaylarında sitozolik Ca²⁺ artışının vezikül füzyonunu başlattığını belirtir. Buradaki Ca²⁺, Ca²⁺-ATPazın taşıdığı iyonla aynı kimyasal türdür, ancak görev bağlamı farklıdır: birinde sinyalin parçası, diğerinde iyon dengesini yeniden kuran pompalanan kargodur. Ekzositozun sonunda vezikül zarı plazma membranına katılır; endositoz ve membran geri dönüşümü, yüzey alanı ve bileşimini düzenlemeye yardım eder.
| Veziküler yol | Başlangıç yönü ve kargo | Seçicilik/ayırt edici yapı | Olası son |
|---|---|---|---|
| Pinositoz | ECF sıvısı içeri | Görece seçici olmayan küçük vezikül | Hücre içi işleme/geri dönüşüm |
| Reseptör aracılı endositoz | Özgül ligand içeri | Reseptör ve çoğu örnekte klatrin kaplı çukur | Endozom, lizozom veya geri dönüşüm |
| Fagositoz | Büyük parçacık içeri | Psödopod ve fagozom | Lizozomla birleşip sindirim |
| Transsitoz | Bir yüzeyden diğerine | Hücre boyunca vezikül trafiği | Karşı yüzde salım |
| Ekzositoz | Hücre içinden ECF'ye | Vezikül–membran kenetlenmesi ve füzyon | Salgı ve yüzeye membran eklenmesi |
- Kargo pinositoz, reseptörlü alım veya fagositozla içeri alınır.
- Vezikül hücre içinde yönlendirilir; kaplama veya reseptör bileşenleri geri kazanılabilir.
- Kargo lizozomal yıkıma gönderilebilir veya hücreyi transsitozla geçebilir.
- Transsitozda karşı yüzde ekzositozla bırakılır; salgı vezikülleri de aynı füzyon ilkesini kullanır.
Küçük polar çözünen için taşıyıcı, büyük intakt molekül veya parçacık için veziküler yol düşünün; “suda çözünmez” ifadesi tek başına yolu belirlemez.
Pinositoz sıvı örneklemesi, fagositoz büyük parçacığın psödopodlarla sarılmasıdır. İkisinin de endositoz olması kargo ve mekanizma farkını silmez.
Ekzositoz yeni taşıyıcı veya reseptörleri membrana ekleyebilir. Böylece hücrenin hormon yanıtı ya da besin taşıma kapasitesi, yalnız gen ifadesiyle değil membran trafiğiyle de ayarlanır.
Pinositoz ve fagositozun temel kargo farkı nedir?
Pinositoz küçük ECF sıvısı örneklerini, fagositoz büyük parçacıkları içeri alır.
Reseptör aracılı endositozun seçiciliği nereden gelir?
Kargonun yüzeydeki özgül reseptöre bağlanmasından.
Transsitozda kargo hücreden nerede çıkar?
Alındığı yüzün karşı tarafında ekzositozla.
Ekzositozun slaytta verilen iki amacı nedir?
Büyük/polar salgı ürünlerini dışarı bırakmak ve membrana kanal, taşıyıcı, reseptör gibi bileşen eklemek.
Fagozom genellikle hangi organelle birleşerek parçacığın yıkımını sağlar?
Lizozomla.
9. Bütün taşıma yollarını aynı soruda ayırmak
Kaynak slaytlar: 76–84
9.1 Özet tabloların ortak mantığı
Slayt 76–82, önceki mekanizmaları farklı karşılaştırma şemalarında tekrar eder. Slayt 76'daki tablo, taşıma yöntemi, taşınan madde, enerji/itici kuvvet ve sınırlayıcı koşul başlıklarını birlikte kullanır. Lipid tabakadan basit difüzyonda O₂, CO₂ ve yağ asitleri gibi apolar maddeler konsantrasyon farkı yönünde hareket eder; fark kaybolduğunda net akı durur. Kanalda iyonlar uygun açık protein yolundan elektrokimyasal gradyanları yönünde ilerler; potansiyel farkı varsa derişimler eşit olmadan da net dengede olabilirler. Osmozda taşınan madde sudur; su hareketi geçmeyen çözünen farkı, karşı hidrostatik basınç veya hücre hacmindeki değişimle sınırlanabilir. Bu üç yolu yalnız “pasif” etiketiyle birleştirmek yetmez; hangi fiziksel yolun gerekli olduğunu da söylemelisiniz.
Taşıyıcı ile kolaylaştırılmış difüzyon, uygun polar maddenin kendi gradyanı yönündedir; Tm ve rekabet gibi kapasite özellikleri vardır. Birincil aktif taşıma ATP gerektirir ve Na⁺, K⁺, H⁺ veya Ca²⁺ gibi uygun iyonları taşıyan pompalara örneklenir. İkincil aktif taşıma, glukoz veya amino asit gibi bir çözüneni eşlenmiş iyon gradyanıyla taşıyabilir; symport/antiport yönünü ayrıca belirtmek gerekir. Slayt 76'daki “limit” sütunu, pasif taşımada dengenin ve taşıyıcı yollarda doygunluğun farklı tür sınırlar olduğunu öğretir. Örneğin taşıyıcı doygun olduğu hâlde konsantrasyon farkı hâlâ bulunabilir; denge ise net itici farkın ortadan kalktığı veya karşı kuvvetle dengelendiği durumdur.
Slayt 77, veziküler yolları aynı sütunlarla tamamlar. Pinositoz küçük ECF sıvı hacmini alır; reseptörlü endositoz seçilen büyük polar kargoyu; fagositoz bakteri veya hücre artıklarını içeri alır. Ekzositoz salgı ürünlerini dışarı verir, yüzey membranına katkıda bulunur. Slaytın “kontrolü iyi anlaşılmıyor” gibi ifadeleri, ilgili özet tablonun genel ve sınırlı kapsamını gösterir; burada üzerinde durulacak açık fark kargo–seçicilik–vezikül yönü üçlüsüdür. Fagositozun “özgül reseptör bağlanması gerekir” satırını bütün fagositoz biçimlerine zorunlu tek yol olarak ezberlemeyin; dersin görselinde tanımayı kolaylaştıran bağlanma örneği bulunur.
9.2 Enerji ekseni ve fiziksel yol ekseni
Özet tablolarda “limit to transport” sütunu farklı yollar için farklı anlam taşır. Lipidden geçen yüksüz bir molekülde net akıyı azaltan şey, derişim farkının zamanla küçülmesidir. Kanalda seçicilik ve açılıp kapanma durumu akının olup olmayacağını belirler; uygun gradyan varken bile kapalı kanal yol sağlamaz. Taşıyıcıda özgüllük ve toplam taşıyıcı sayısı yanında her taşıyıcının döngü hızı üst sınırı belirler. Veziküler süreçte ise reseptör bağlanması, membran çökmesi, vezikülün hedefe gitmesi ve füzyonu gibi ardışık basamakların her biri akışa sınır koyabilir. Bu nedenle “taşıma sınırı vardır” cümlesi her mekanizmada aynı fiziksel nedene bağlanmaz. Slayt 76–77'yi okurken limit sütunundaki terimi hangi basamakla ilişkilendirdiğinizi yüksek sesle söylemek, mekanizmaları sağlam biçimde ayırır.
Slayt 78–79, taşıma sınıflandırmasını iki eksende okumayı sağlar. Enerji ekseni: pasif difüzyon ve osmoz mevcut gradyanlardan yararlanır; birincil aktif taşıma ATP'yi doğrudan kullanır; ikincil aktif taşıma ATP ile oluşturulan gradyana bağımlıdır; veziküler olaylarda membran şekillenmesi ve trafik için enerji gerekir. Fiziksel yol ekseni: madde doğrudan çift tabakadan, kanal/taşıyıcı gibi membran proteininden veya zarlı vezikülden geçer. Aynı mekanizmayı bu iki eksende ayrı ayrı etiketleyebilirsiniz. Örneğin GLUT üzerinden glukoz taşınması protein aracılı ve pasif, Na⁺/K⁺-ATPaz protein aracılı ve birincil aktif, pinositoz ise veziküler ve enerji gerektiren bir olaydır. Bu çapraz sınıflandırma, “protein varsa aktiftir” gibi yanlış kestirmeyi engeller.
Slayt 80, lipidden geçiş, kanal, kolaylaştırılmış difüzyon, birincil ve ikincil aktif taşıma için akı yönü, denge/kararlı durum, integral protein kullanımı, doygunluk, kimyasal seçicilik, enerji kaynağı ve örnek maddeleri tek tabloda sunar. Lipid tabakadan geçişte integral taşıma proteini gerekmez; kanal ve taşıyıcı yollarında gerekir. Kanal seçicidir fakat taşıyıcıların klasik Tm doygunluk davranışıyla sınıflandırılmaz. Kolaylaştırılmış difüzyon ve iki aktif taşıma biçimi taşıyıcıya bağlı olduğu için doygunluk gösterebilir. Pasif, yüksüz çözünenin denge derişimleri eşitlenebilir; iyon kanalında elektriksel potansiyel varsa kararlı durumda iki tarafın iyon derişimi eşit olmak zorunda değildir. Aktif taşıma farkları sürdürdüğünden iki tarafta farklı derişimlerle kararlı durum mümkündür. Slayt 81 bu farkları özellikle Na⁺ gradyanına bağımlılık açısından tekrar eder: basit ve kolaylaştırılmış difüzyon ile birincil pompa bu gradyanı doğrudan itici güç olarak kullanmaz; cotransport/countertransport örnekleri kullanır.
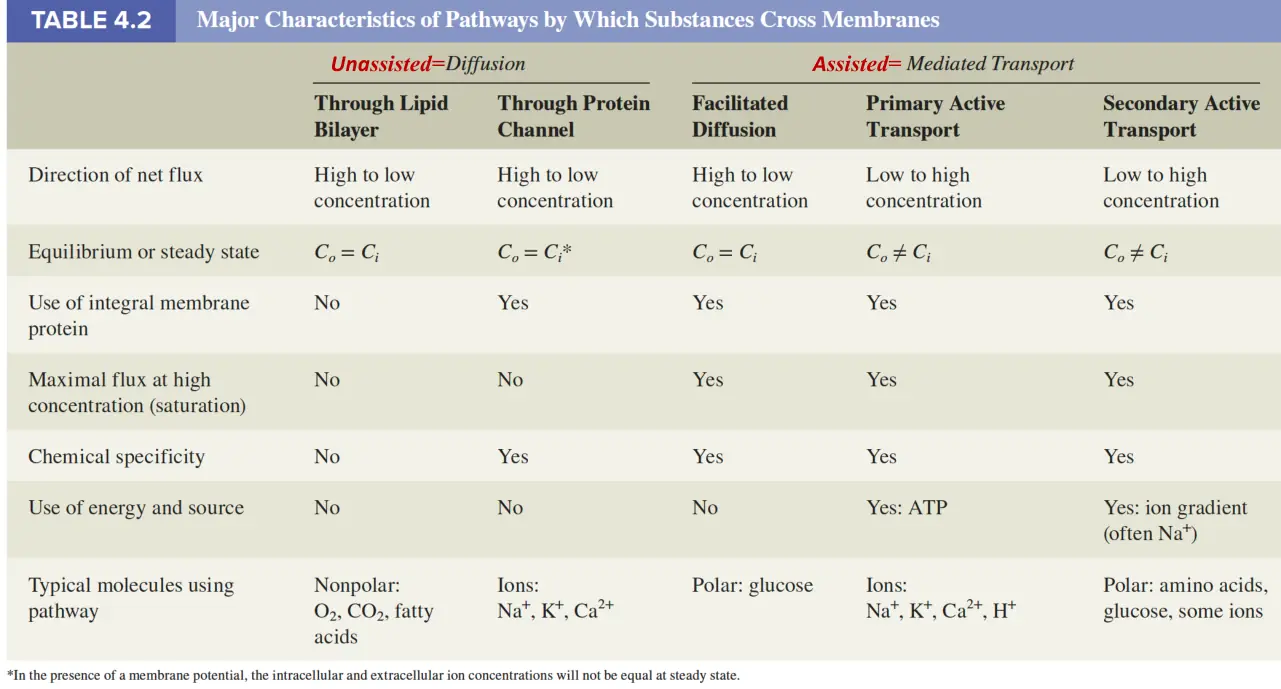
Slayt 82'nin “pasif süreçler–aktif süreçler” görseli, difüzyon, osmoz ve kolaylaştırılmış difüzyonu bir tarafta; pompalar, endositoz ve ekzositozu öbür tarafta gösterir. Sınavda resim tanıma için değil, fizyolojik ilişki kurmak için kullanın. Glukoz görüp daima GLUT demeyin; apikal epitel örneğinde Na⁺–glukoz symportu olabilir. Suyun hücre içine girdiğini görüp “aktif taşıma” demeyin; osmoz pasiftir. ATP simgesi görüp kargo molekülünün pompanın içinden geçtiğini varsaymayın; vezikül oluşumunda ATP harcanabilir. Sonuç, tek anahtar sözcük yerine kargo, yol, gradyan ve enerji bilgisini birleştirmektir.
9.3 Dersin klinik ve kavramsal kapanışı
Slayt 76–82'deki tabloların her satırını ayrı bir karşılaştırma ekseni olarak kullanın. Enerji gereksinimi ile protein gereksinimi eş anlamlı değildir: kanal protein gerektirir fakat iyonu ATP kullanarak pompalamaz. Doygunluk ile denge de aynı olay değildir: taşıyıcı tüm bağlanma yerleri meşgulken kapasite sınırına ulaşabilir, üstelik iki taraf arasındaki gradyan hâlâ bulunabilir. Pasif yüksüz maddenin net difüzyonu ise gradyan bittiğinde dinamik dengeye yaklaşır. Seçicilik üçüncü eksendir; iyon kanalı yapısına uyan iyonu, taşıyıcı tanıdığı molekülü, reseptör aracılı endositoz bağlanan ligandı tercih eder. Lipid tabaka ise özgül bağlanma cebi yerine maddenin fizikokimyasal uygunluğuna göre geçirgendir. Sorularda “hepsi protein kullanır” veya “hepsi ATP ister” gibi geniş ifadeleri bu eksenlerden biriyle sınayabilirsiniz. Böylece özet görseli yalnız ezber tablosu olmaktan çıkar, yeni örnekleri sınıflandıran araç olur.
Özellikle aynı kargo, farklı yol ilkesini uygulayın. Glukoz bir hücrede GLUT ile kendi gradyanı yönünde geçebilirken, başka bir membranda Na⁺–glukoz symportu ile Na⁺ gradyanına bağlanarak taşınabilir. Su aquaporin kanalından hızlı, lipid tabakadan daha yavaş geçebilir; iki durumda da su hareketinin net yönünü osmotik koşullar belirler. Na⁺ açık kanaldan elektrokimyasal gradyanı yönünde akabilir, Na⁺/K⁺-ATPaz tarafından gradyanına karşı dışarı taşınabilir. Demek ki maddenin adını görmek mekanizmayı seçmek için yeterli değildir. Hangi membran yüzü, hangi protein, hangi yönde gradyan ve hangi enerji bağlantısı bulunduğu belirtilmelidir. Bir vaka bu bilgilerin hepsini vermiyorsa, kesin olmayan sonucu kesinmiş gibi işaretlemek yerine çıkarılabilen en dar önermeyi seçin. Bu yaklaşım hem fizyoloji yorumunu hem çoktan seçmeli soru çözümünü güçlendirir.
Slayt 83, membranı dinamik fosfolipid bariyer; proteinleri taşıma ve iletişim aracı; kolesterolü kararlılık–esneklik öğesi olarak tekrarlar. Pasif süreçlerin ATP harcamadığı, aktif süreçlerin enerji bağlantısı bulunduğu, Na⁺/K⁺ pompasının iyon ve hacim dengesini koruduğu, tonisitenin hücre hacmini belirlediği ve veziküler süreçlerin büyük kargoyu hareket ettirdiği özetlenir. Dersin fizyoloji, farmakoloji ve tıbbi tedavi açısından önemi, mekanizmaların ortak karar ağacında toplanmasıdır. Slayt 84 yeni bilimsel içerik içermeyen kapanış/logodur; bu nedenle ondan kavram veya görsel çıkarılmamıştır. Tüm sunum bu bölümdeki özet görsellerle 1–83'teki içerik arasında eşleştirilmiştir.
| Madde/durum | En uygun yol | İtici kuvvet | Dikkat edilecek sınır |
|---|---|---|---|
| O₂ veya CO₂ | Lipid tabakadan basit difüzyon | Konsantrasyon/parsiyel basınç farkı | Alan, kalınlık, geçirgenlik |
| Açık kanaldan Na⁺ | Kanal difüzyonu | Elektrokimyasal gradyan | Kanalın açıklığı ve seçiciliği |
| Su | Lipid yolu veya aquaporin; osmoz | Su potansiyeli/etkili çözünen farkı | Geçmeyen çözünen ve karşı basınç |
| GLUT ile glukoz | Kolaylaştırılmış difüzyon | Glukoz gradyanı | Özgüllük, rekabet, Tm |
| Pompadan Na⁺/K⁺ | Birincil aktif taşıma | ATP | Taşıyıcı kapasitesi, ATP varlığı |
| Na⁺ ile birlikte glukoz | İkincil aktif symport | Na⁺ gradyanı | Pompanın kurduğu gradyana bağımlılık |
| Büyük protein/partikül | Uygun veziküler yol | Membran trafiği için enerji | Reseptör, vezikül ve hedef kaderi |
- Kargonun büyüklüğünü ve yük/polaritesini tanımlayın.
- Kargonun lipid, açık kanal, taşıyıcı veya vezikül yolundan hangisini kullandığını bulun.
- İyon için elektrokimyasal; yüksüz madde için derişim; su için etkili ozmotik farkı değerlendirin.
- Gradyana karşıysa doğrudan ATP mi, eşlenmiş iyon gradyanı mı, vezikül trafiği mi gerektiğini ayırın.
- Taşıyıcı varsa özgüllük–rekabet–Tm; vezikül varsa yön–seçicilik–son kaderi kontrol edin.
Kargo ne? Yol ne? İtici güç ne? Sınır ne? Slayt 76–82'nin bütün tabloları bu dört soruya farklı sırayla cevap verir.
Yüklü iyonun elektriksel denge noktası veya suya karşı hidrostatik basınç dengesi, iki tarafta eşit çözünen derişimi gerektirmeyebilir.
IV sıvı seçimi tonisiteyi; glukoz alımı taşıyıcı kapasitesini; sinir–kas çalışması iyon gradyanlarını; salgı ve hücre yüzeyi düzenlenmesi veziküler trafiği doğrudan ilgilendirir.
Lipidden geçiş: doğrudan; kanal: pasif gözenek; GLUT: pasif taşıyıcı; ATPaz: doğrudan aktif; symport/antiport: gradyanla eşlenmiş aktif; vezikül: büyük kargo trafiği.
GLUT ile Na⁺/K⁺-ATPazın ortak fiziksel yolu ve farklı enerji özelliği nedir?
İkisi de membran proteini kullanır; GLUT pasif, ATPaz doğrudan ATP kullanan aktiftir.
Açık iyon kanalı neden taşıyıcı Tm'siyle tanımlanmaz?
Kanal, her iyon için taşıyıcı konformasyon döngüsüyle çalışmaz; akı açıklık ve elektrokimyasal kuvvete bağlıdır.
İkincil aktif taşımanın birincil pompaya bağımlılığı nedir?
Birincil pompanın kurduğu iyon gradyanı ikincil taşıyıcının enerji kaynağıdır.
Osmozda taşınan madde nedir ve kalıcı hacim etkisini hangi çözünen belirler?
Su taşınır; hücre zarını geçmeyen etkili çözünenler hacim yönünü belirler.
Slayt 84 rehbere neden bilimsel görsel olarak alınmadı?
Kapanış logosudur; yeni kavram, şema veya klinik veri sunmaz.
Hızlı tekrar
| Temel eşleştirme | Hatırlanacak ilişki |
|---|---|
| Fosfolipid başı ↔ su | Hidrofilik; kuyruk ↔ hidrofobik membran içi |
| ECF ↔ ICF | ECF'de Na⁺, Cl⁻/HCO₃⁻; ICF'de K⁺, fosfat/protein anyonları baskın |
| Kanal ↔ taşıyıcı | Sulu geçit ↔ özgül bağlanma ve konformasyon döngüsü |
| Pasif ↔ aktif | Elverişli gradyan ↔ doğrudan/dolaylı enerjiyle gradyana karşı iş |
| Fick ↔ akı | ΔC, alan, lipid çözünürlüğü artırır; ağırlık ve mesafe azaltır |
| Ozmolarite ↔ tonisite | Toplam parçacık sayısı ↔ geçmeyen çözünenin hacim etkisi |
| İzo/hipo/hipertonik ECF | Hacim sabit / hücre şişer / hücre büzüşür |
| GLUT ↔ Na⁺–glukoz symport | Pasif glukoz gradyanı ↔ Na⁺ gradyanına bağlı ikincil aktif alım |
| Na⁺/K⁺-ATPaz | 3 Na⁺ dışarı, 2 K⁺ içeri; ATP doğrudan harcanır |
| Symport ↔ antiport | Eşlenmiş maddeler aynı yönde ↔ zıt yönde |
| Pinositoz ↔ fagositoz | ECF sıvı örneği ↔ büyük parçacık/psödopod |
| Endositoz ↔ ekzositoz ↔ transsitoz | İçeri alım ↔ dışarı salım ↔ hücreyi bir yüzden öbürüne geçiş |
20 özgün çalışma sorusu
Bu sorular çalışma amacıyla özgün hazırlanmıştır; çıkmış sınav soruları değildir.
Bir hücrenin dışındaki O₂ derişimi yükselirken membran alanı ve kalınlığı sabit kalıyor. O₂'nin net geçişi için en uygun açıklama hangisidir? A) Kolaylaştırılmış difüzyon zorunlu olur · B) Konsantrasyon farkı büyüdüğü için lipid tabakadan net difüzyon artar · C) Na⁺/K⁺ pompası O₂'yi taşır · D) O₂ yalnız vezikülle girer · E) Kalınlık artmadan difüzyon değişmez.
Elektron mikroskobunda görülen koyu–açık–koyu membran profili neyi temsil eder? A) Üç ayrı plazma zarı · B) İki hücrenin temas yeri · C) Tek fosfolipid çift tabakanın moleküler düzeni · D) Yalnız protein tabakası · E) Glikokaliksin üç katı.
Bir iyon kanalı membranda bulunuyor fakat kapalı. İyonun dışarıdaki derişimi yüksekse hangi sonuç kesin olarak söylenebilir? A) İyon mutlaka içeri akar · B) İyon ATP ile içeri pompalanır · C) Kapalı kanal bu yol üzerinden net akıya izin vermez · D) İyon protein olmadan lipid çekirdeğini aşar · E) Hücre hemen izotonik olur.
Bir membran proteini lipide gömülü, dıştaki hormon bağlandığında hücre içi sinyali başlatıyor. En uygun ikili tanım nedir? A) Periferik–kanal · B) İntegral–reseptör · C) Periferik–glikokaliks · D) İntegral–yalnız pompa · E) Fosfolipid–enzim.
Aşağıdakilerden hangisi membran potansiyeli ile kompartımanların yaklaşık elektriksel nötrlüğünü birlikte açıklar? A) ICF bütünüyle güçlü negatif yük taşır · B) ECF bütünüyle pozitif yük taşır · C) Membran yakınındaki küçük yük ayrımı potansiyel oluştururken büyük hacimler yaklaşık nötrdür · D) Potansiyel için iyon gerekmez · E) Nötrlük varsa iyon gradyanı olamaz.
Fick yaklaşımında difüzyon alanı artıp membran kalınlığı da artıyorsa hangi ifade doğrudur? A) Her durumda net akı kesin artar · B) Her durumda net akı kesin azalır · C) İki etkinin büyüklüğü değerlendirilmeden net yön kesin söylenemez · D) Alanın hiç etkisi yoktur · E) Kalınlık yalnız aktif taşımayı etkiler.
Dinamik dengede uygun bir yüksüz madde için hangisi doğrudur? A) Moleküller durur · B) ATP harcanır · C) Karşıt yönlerde geçiş sürer, net akı sıfırdır · D) Membran kapanır · E) Maddenin tamamı hücre içine geçer.
Bir çözelti hücre dışına konduğunda hücre şişiyorsa çözelti hücreye göre nasıldır? A) Hipertonik; su dışarı çıkar · B) İzotonik; hacim sabit · C) Hipotonik; su içeri girer · D) Hipertonik; su içeri girer · E) Ozmolaritesi ne olursa olsun izotonik.
Eşit molar glukoz ve ideal ayrışan NaCl çözeltileri için parçacık sayısına dayalı hangisi doğrudur? A) Glukoz yaklaşık iki kat osmotik parçacık verir · B) NaCl yaklaşık iki kat osmotik parçacık verir · C) İkisi de daima aynı tonisitededir · D) NaCl parçacık vermez · E) Ozmolarite molekülün gram ağırlığıyla aynıdır.
Suyu geçiren, çözüneni geçirmeyen bir ayırıcının sağında daha yüksek çözünen derişimi var. Başlangıçta net su yönü ve zamanla karşı koyan kuvvet hangisidir? A) Sağa; sağdaki artan hidrostatik basınç · B) Sola; sağdaki hidrostatik basınç · C) Sağa; taşıyıcı Tm · D) Sola; ATPaz · E) Su hareket etmez; derişim farklılığı önemsizdir.
GLUT aracılı glukoz alımı için en doğru açıklama hangisidir? A) Taşıyıcı her döngüde ATP'yi doğrudan parçalar · B) Glukoz gradyanı yönünde protein aracılı pasif geçiştir · C) Glukoz yalnız açık iyon kanalından geçer · D) Tm yoktur · E) Vezikül gerekir.
Taşıyıcıya bağlanan iki benzer madde bir aradayken her birinin taşınma hızı düşüyor. Hangi özellik gösterilmiştir? A) Osmoz · B) Rekabet · C) Basit lipid difüzyonu · D) Crenation · E) Hidrostatik denge.
İnsülinin membranda GLUT4 sayısını artırması hangi sonucu en doğrudan açıklar? A) Glukozun apolar olması · B) Glukoz alımı için toplam taşıyıcı kapasitesinin artması · C) Bütün kanalların açılması · D) Na⁺/K⁺ pompasının yok olması · E) Fagositozun başlaması.
Bir Na⁺/K⁺-ATPaz döngüsünde iyon yön ve sayıları hangi seçenekte doğrudur? A) 2 Na⁺ dışarı, 3 K⁺ içeri · B) 3 Na⁺ içeri, 2 K⁺ dışarı · C) 3 Na⁺ dışarı, 2 K⁺ içeri · D) 1 Na⁺ ve 1 K⁺ aynı yönde · E) Yalnız Na⁺ dışarı.
Na⁺–glukoz symportu, Na⁺/K⁺ pompası durduktan bir süre sonra neden zayıflayabilir? A) GLUT artık integral protein değildir · B) İtici Na⁺ gradyanı sürdürülemez · C) Glukoz apolarlaşır · D) Osmoz glukozu yok eder · E) Hücre dışı bütün iyonlar anında sıfır olur.
Na⁺ içeri girerken H⁺ dışarı çıkıyorsa eşlenmiş taşıma yönüne göre ne ad verilir? A) Symport · B) Antiport · C) Pinositoz · D) Osmoz · E) Basit difüzyon.
Bir beyaz kan hücresi bakteriyi psödopodlarla sarıp vezikül oluşturuyor. Süreç hangisidir? A) Pinositoz · B) Fagositoz · C) GLUT difüzyonu · D) Aquaporin osmozu · E) Na⁺/K⁺ pompası.
Belirli büyük polar bir ligand yüzey reseptörüne bağlanıp klatrin kaplı çukurla içeri alınıyor. En uygun sınıflandırma hangisidir? A) Basit difüzyon · B) Reseptör aracılı endositoz · C) Fick akısı · D) Primer aktif iyon pompası · E) Sızıntı kanalı.
Bir protein kargosu endotelin bir yüzünden alınıp yıkılmadan karşı yüzünden bırakılıyor. Bu yol nedir? A) Transsitoz · B) Crenation · C) Fosforilasyon · D) Kanal sızıntısı · E) Yalnız lizozomal yıkım.
Aşağıdakilerden hangisi slaytların iki eksenli taşıma sınıflandırmasına uygun bir eşleştirmedir? A) GLUT: protein aracılı ve pasif · B) Açık kanal: ATP ile iyonu gradyana karşı iter · C) Na⁺/K⁺-ATPaz: protein gerektirmeyen pasif difüzyon · D) Pinositoz: lipidden basit difüzyon · E) Ekzositoz: yalnız küçük iyonların kanaldan geçişi.
Gerekçeli cevap anahtarı
- B — O₂ küçük ve apolardır; geçirgenlik, alan ve kalınlık sabitken daha büyük derişim farkı net lipid difüzyonunu artırır.
- C — Üç bant, tek çift tabakanın elektron mikroskobu görünümüdür; üç ayrı zar değildir.
- C — Gradyan ancak açık/geçirilebilir yol varsa akı oluşturur; kapalı kanal bu yolu sağlamaz.
- B — Tabakaya gömülme integral konumu, hormon tanıyıp yanıt başlatma reseptör işlevini tanımlar.
- C — Membrana yakın küçük yük ayrımı potansiyel yaratırken ECF ve ICF'nin büyük hacimleri yaklaşık elektronötrdür.
- C — Artan alan akıyı artırır, artan kalınlık azaltır; nicel büyüklükler verilmeden bileşke belirlenemez.
- C — Dinamik dengede iki yönlü moleküler hareket sürer, yalnız net geçiş sıfırdır.
- C — Dış ortam hipotonikse su hücreye net girer ve hücre şişer.
- B — İdeal NaCl Na⁺ ve Cl⁻ olarak iki parçacık, glukoz tek parçacık verir; tonisite için ayrıca geçirgenlik gerekir.
- A — Su geçmeyen çözünenin daha yoğun olduğu sağ tarafa ilerler; yükselen sıvı sütununun hidrostatik basıncı karşı koyar.
- B — GLUT, glukozun kendi gradyanı yönünde ATP harcamadan çalışabilen taşıyıcıdır.
- B — İki benzer maddenin aynı taşıyıcı için yarışması rekabeti gösterir.
- B — Yüzeyde daha çok GLUT4 bulunması daha fazla taşıyıcı döngüsüne ve artan toplam kapasiteye olanak verir.
- C — Pompa ATP kullanan bir döngüde 3 Na⁺'ı dışarı, 2 K⁺'ı içeri taşır.
- B — Symport Na⁺'ın elverişli gradyanına dayanır; pompa bu gradyanı sürdüremezse itici güç azalır.
- B — Eşlenmiş maddeler ters yönlerde hareket ettiğinden antiporttur.
- B — Büyük parçacığın psödopodlarla sarılması fagositozun ayırt edici yoludur.
- B — Özgül yüzey reseptörü ile seçilip kaplı veziküle alınma reseptör aracılı endositozdur.
- A — Bir yüzden alınıp diğer yüzden bırakılma, lizozomal yıkım olmadan gerçekleşen transsitozdur.
- A — GLUT protein aracılıdır ve uygun glukoz gradyanı yönünde pasif geçiş sağlar.
Slayt notları, düzeltmeler ve kaynak haritası
Kaynakla doğrulanan açıklamalar:
- Slayt 14: Kanal başlığının son cümlesi taşıyıcı özgüllüğü cümlesini yineler. Kanalın sulu geçit, taşıyıcının bağlanma–konformasyon döngüsü olduğu ayrımı NCBI Bookshelf, Principles of Membrane Transport ile uyumludur.
- Slayt 21 ve 23: Slayt 21'de glikoprotein başlığına eşlik eden görsel esas olarak eritrosit membranı–sitoskeleton bağlantılarını gösterir. Slayt 23'te ABO işaretleriyle birlikte çizilen RhD aynı kimyasal sınıfa sokulmamalıdır: ABO antijenleri şeker yapılarıdır, RhD ise membran proteinidir. NCBI Bookshelf, Blood group antigens are surface markers on the red blood cell membrane.
- Slayt 28 ve 80: Dersin “unassisted” sütununda protein kanalından difüzyon da vardır. Bu, slaytın enerji/taşıyıcı döngüsü eksenindeki adlandırmasıdır; kanaldan geçiş yine protein gerektirir. Kanal ve taşıyıcıların her ikisinin protein aracılı yol olduğu NCBI Bookshelf, Principles of Membrane Transport içinde açıkça ayrılır.
- Slayt 42 ve 46: Slayt 42'de iki maddeye de geçirgen bir membran çizimi, kalıcı tonisiteyi açıklamak için yeterli değildir; çözünenin geçip geçmediği önemlidir. Slayt 46'daki “denge anında iki taraftaki çözünen derişimleri eşit” ifadesi U borusu için zorunlu değildir: karşı hidrostatik basınç net su akımını, çözünen farkı sürerken de dengeleyebilir. NCBI Bookshelf, Physiology, Osmosis membran geçirgenliğinin osmotik etkiyi değiştirdiğini açıklar; The physical basis of osmosis basınç farkı ile seçici membran dengesini inceler.
- Slayt 54: “Proteinler, glukoz ve amino asitler” aynı taşıyıcı örnekleri gibi yazılmıştır; aynı slayt büyük moleküller için veziküler yolu ayrıca verir. İntakt büyük proteinlerin genel hücre yüzeyi alımı reseptör aracılı endositoz gibi veziküler yollarla açıklanır; küçük polar maddeler için membran taşıyıcıları kullanılır. NCBI Bookshelf, Transport of Small Molecules; Transport into the Cell from the Plasma Membrane: Endocytosis.
- Slayt 66: Pompanın “insan bedeninin toplam enerjisinin yaklaşık %20'si” ifadesi yaklaşık ve koşula bağlı bir tahmin olarak okunmalıdır. Bir fizyoloji derlemesi tüm vücut düzeyinde Na⁺/K⁺-ATPaz için ATP kullanımını yaklaşık %19–28 aralığında verir; beyin gibi dokularda oran farklıdır. American Physiological Society, Na,K-ATPase regulation in skeletal muscle; NCBI Bookshelf, Functional Properties of the Na⁺/K⁺ Pump.
| Rehber bölümü | Slayt eşleşmesi | İçerik |
|---|---|---|
| 1. Plazma membranının yapısı | 1–8 | Başlık/hedefler; lipid, protein, karbonhidrat, fosfolipid ve kolesterol |
| 2. Membran proteinleri | 9–23 | İntegral/periferik, akışkan mozaik, yedi işlev, kanal kapıları, glikokaliks ve kan grubu |
| 3. ECF–ICF ve sınıflandırma | 24–32 | Kompartıman iyonları, seçici geçirgenlik, pasif/aktif, gradyanlar |
| 4. Difüzyon | 33–41 | Rastgele hareket, dinamik denge, membran geçişi, Fick değişkenleri |
| 5. Osmoz | 42–53 | Aquaporin, ozmotik/hidrostatik basınç, ozmolarite, tonisite, IV sıvı |
| 6. Taşıyıcı aracılı geçiş | 54–61 | Taşıyıcı döngüsü, özgüllük, Tm, rekabet, GLUT ve kolaylaştırılmış difüzyon |
| 7. Aktif taşıma | 62–71 | ATPazlar, Na⁺/K⁺ pompası, ikincil aktif symport/antiport örnekleri |
| 8. Veziküler taşıma | 72–75 | Endositoz türleri, lizozom, transsitoz ve ekzositoz |
| 9. Bütünleştirme | 76–84 | Karşılaştırma tabloları, enerji/yol eksenleri, genel özet; 84 kapanış logosu |