Bacterial Genetics
Bakteri genetiği çalışma rehberi; 40 flashcard ve 20 gerekçeli çalışma sorusu
Microbiology · Üsküdar Üniversitesi · Diş Hekimliği
Bu rehber bakteri genetiğinin temel yapılarını, DNA bilgisinin işlenmesini, mutasyonları ve bakteriler arasında gen aktarımının antibiyotik direncine nasıl bağlandığını adım adım açıklar. Çalışırken her yeni terimi bir önceki basamağa bağlayın: DNA'nın yapısı → gen ifadesi → genetik değişim → klinik sonuç.
Önce DNA, RNA ve protein arasındaki bilgi yönünü kurun. Ardından replikasyon enzimlerini bir şemada sıralayın; mutasyonları mekanizma ve sonuç olarak ayrı sınıflayın. Son turda transformasyon, konjugasyon ve transdüksiyonu DNA'nın kaynağı ve taşıyıcısı üzerinden ayırın. Bölüm sonu kartlarını kapatarak yanıtlayın, özgün soruları ise gerekçeli anahtara bakmadan çözün.
1. Genetik bilginin taşıyıcıları ve bakteri kromozomu
Kaynak slaytlar: 1–15
1.1 Hücre tipleri ve bilginin yeri
Slayt 1 dersin çerçevesini Bacterial Genetics olarak belirler. Genetik, kalıtsal bilginin hangi molekülde saklandığını, bu bilginin nasıl kullanıldığını ve kuşaklar arasında nasıl değiştiğini inceler. Bakteride bu sorular doğrudan DNA'nın konumu ve organizasyonuyla ilişkilidir. Slayt 2'nin görseli ökaryot hücre, prokaryot hücre ve virüsü yan yana gösterir. Ökaryot hücrede kromozomlar çekirdekte, ayrıca mitokondri ve kloroplast gibi organellerde DNA bulunabilir. Bazı mantar ve protozoonlarda plazmid örnekleri de çizilmiştir. Prokaryot örneğinde çekirdekle çevrilmemiş kromozom ve ondan ayrı plazmidler görülür. Virüs çiziminde ise hücresel kromozom değil, kapsid içinde DNA veya RNA genomu vurgulanır. Bu karşılaştırma, “genetik materyal”in her canlı veya virüste aynı hücresel bölmede bulunmadığını gösterir.
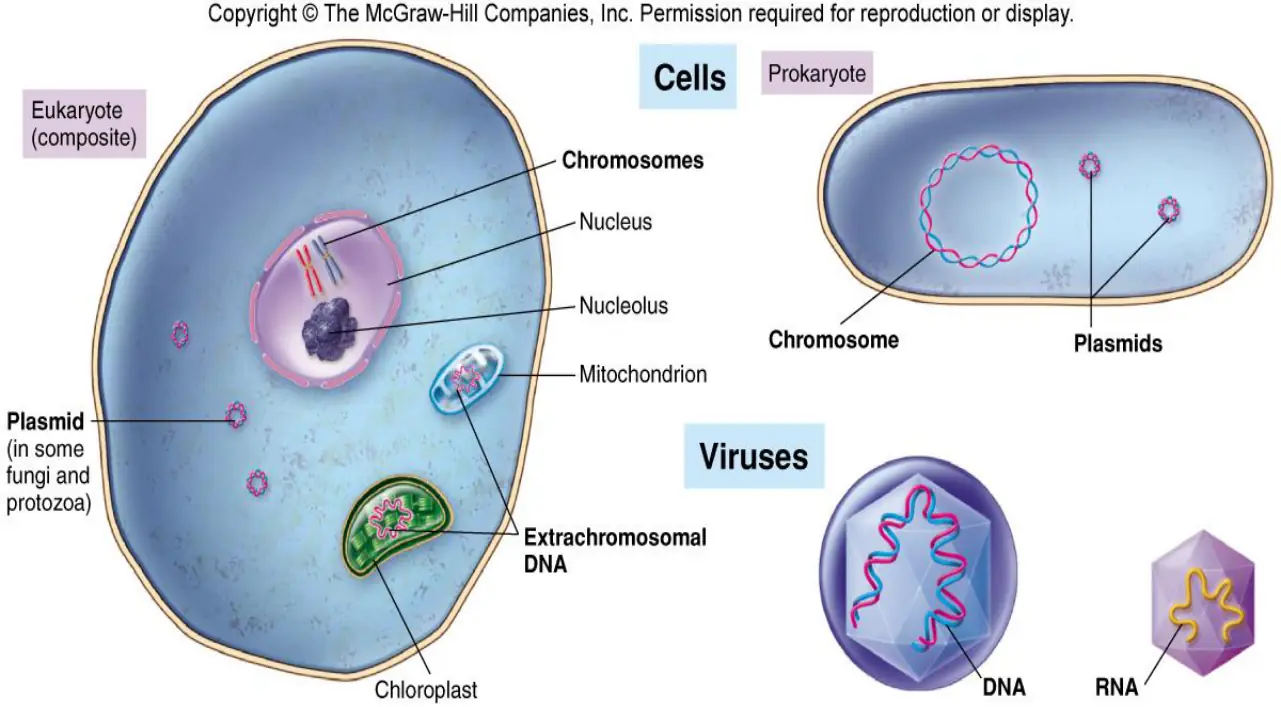
Slayt 3 hücredeki üç bilgi makromolekülünü DNA, RNA ve protein olarak sayar. DNA kalıcı dizisel bilgi deposudur; RNA bu bilginin okunmasına ve protein üretimine aracılık eder; proteinler yapısal ve katalitik görevler üstlenerek gözlenen özellikleri oluşturur. Aralarındaki ilişki salt üç isim ezberi değildir: DNA'daki bir baz değişikliği RNA dizisini, ilgili kodonu ve sonuçta protein işlevini değiştirebilir. Bununla birlikte her DNA değişikliği proteini değiştirmez; bu ayrım mutasyonlar bölümünde önemlidir.
Bu üç molekülü birlikte düşünmenin pratik yolu, aynı gen için üç ayrı soru sormaktır. “Hangi kalıtsal talimat var?” DNA düzeyindeki sorudur. “Talimat şu anda okunuyor mu, hangi RNA oluşuyor?” RNA düzeyindeki sorudur. “Hücrede hangi etkin ürün var?” protein düzeyindeki sorudur. Aynı DNA dizisini taşıyan iki hücrede farklı RNA miktarları bulunması mümkündür; bu, DNA'nın farklı olmasını gerektirmez. Öte yandan RNA miktarı da proteinin kesin işlevini tek başına vermez, çünkü proteinin amino asit dizisi ve katlanması belirleyicidir. Slayt 2'deki virüs karşılaştırmasında da “genetik bilgi” terimini “bakteri kromozomu” ile eşitlememek gerekir: virüs çizimlerinin biri DNA, diğeri RNA genomu içerir. Bu çizim, dersin odağı bakteriler olsa da bilgi taşıyan nükleik asidin biyolojik gruplara göre farklı biçimde sunulabileceğini gösterir.
1.2 Genotip, fenotip, gen ve genom
Genotip (genotype) organizmanın genlerinin düzeni ve alel içeriğidir. Fenotip (phenotype) ise genotipin çevreyle etkileşmesi sonucu gözlenen özelliktir; slayt 4 bu ayrımı vurgular. Örneğin direnç geni taşıyan bir bakterinin belirli antibiyotik karşısındaki davranışı genotiple ilişkili olsa da, genin ifade edilmesi ve ortam koşulları ölçülen fenotipi etkiler. Fenotip yalnız görünüş değildir; büyüme, enzim üretimi ve ilaç duyarlılığı gibi ölçülebilir işlevleri de kapsar. Aynı genotip farklı koşullarda farklı düzeyde gen ifadesi gösterebilir. Dolayısıyla “gen var” gözlemi ile “özellik ortaya çıktı” gözlemi aynı önerme değildir.
Slayt 5'te genom (genome) hücrenin genetik koleksiyonu, gen (gene) ise işlevsel genetik bilgi birimi olarak tanımlanır. Genom kromozomda düzenlenir; bakteride ayrıca plazmid gibi kromozom dışı öğeler bulunabilir. Bir gen protein kodlayabileceği gibi işlevsel RNA da kodlayabilir. Genetik materyalin iki temel görevi burada replikasyon, yani bilginin kopyalanması, ve ekspresyon, yani bilginin hücresel ürüne dönüştürülmesidir. Replikasyon kuşaktan kuşağa sürekliliği; ekspresyon hücrenin o anda iş yapmasını sağlar. Bu iki görevi birbirine karıştırmak, DNA'nın her okunuşunun kopyalanma olduğu yanılgısına yol açar.
| Kavram | Ne anlatır? | Örnek soru |
|---|---|---|
| Genotip | Hücrenin taşıdığı genetik dizilim | Direnç geni mevcut mu? |
| Fenotip | Belirli koşulda gözlenen özellik | Bakteri antibiyotik altında büyüyor mu? |
| Gen | İşlevsel bilgi birimi | Bu dizi hangi ürünü kodlar? |
| Genom | Genetik öğelerin bütünü | Hücrenin toplam genetik içeriği nedir? |
| Replikasyon | DNA'nın DNA olarak çoğaltılması | Bölünmeden önce dizi nasıl korunur? |
| Ekspresyon | Gen bilgisinin RNA/protein işlevine dönüşmesi | Genin etkisi nasıl ortaya çıkar? |
Kromozomda veya plazmidde bir dizinin bulunması, o dizinin her koşulda transkribe edildiğini ya da ölçülebilir fenotip verdiğini kanıtlamaz. Slayt 34–35'teki indüksiyon ve baskılanma bu farkı açıklar.
1.3 Nükleotit, zincir yönü ve çift sarmal
Slayt 6–7'de DNA'nın yinelenen birimi nükleotit (nucleotide) olarak verilir: fosfat grubu, pentoz şeker ve azotlu baz. DNA'nın şekeri deoksiriboz, RNA'nın şekeri ribozdur. Ribozun 2′ konumunda hidroksil bulunması, deoksiribozda bunun olmaması iki molekülün kimyasal ayrımını oluşturur. Bazlar iki aileye ayrılır: pürinler adenin (A) ve guanin (G); pirimidinler sitozin (C), timin (T) ve urasil (U). DNA'da A, G, C, T; RNA'da A, G, C, U kullanılır. Baz şekerin 1′ karbonuna bağlanır. Ardışık nükleotitlerin şeker ve fosfatları arasında fosfodiester bağı kurulur; böylece omurga oluşur.
Zincirin 5′ ucu fosfat ve 3′ ucu serbest hidroksil yönüyle tanımlanır. Bu yön, yalnız çizim geleneği değildir: polimeraz yeni nükleotidi mevcut zincirin 3′-OH ucuna ekler. Slayt 8'deki DNA çift sarmalında iki zincir birbirine tamamlayıcıdır ve ters yönlü uzanır. A, T ile; G, C ile eşleşir. Bazlar arasındaki hidrojen bağları iki zincirin bir arada kalmasına katkı verir. Eşleşmenin seçiciliği hem replikasyonda kalıp kullanımını hem de DNA dizisinden RNA dizisinin çıkarılmasını mümkün kılar. Bir zincirin dizisi bilinince diğerinin dizisi, yönü açıkça belirtilmek şartıyla yazılabilir. “ATGCAT'nin karşısına UACGUA” denirken hangi zincirin kalıp olduğu ve dizilerin yönü ayrıca belirtilmelidir.
“Yeni DNA 5′→3′ sentezlenir” ifadesi, polimerazın kalıp üzerinde 3′→5′ yönünde ilerlemesiyle aynı olayın iki yüzüdür. İki yönü tek bir zincire aitmiş gibi okumayın.
Slayt 9 DNA uzunluğunu baz çifti (bp) üzerinden ölçer: 1.000 bp = 1 kbp, 1.000.000 bp = 1 Mbp. Verilen E. coli genomu yaklaşık 4,64 Mbp'dir; sayı bir dizinin uzunluğunu belirtir, kromozomun hücre içindeki düz çizgi uzunluğunu değil. Slayt 15'te açılmış DNA'nın yaklaşık 1,35 mm olması, bakteriyel hücreye sığma problemini somutlaştırır. “Birkaç yüz kez daha uzun” ifadesi, DNA'nın serbestçe düz durmadığını; kıvrılma ve paketlenmenin gerekli olduğunu anlatır.
Baz çifti birimini kullanırken “tek bir zincirdeki nükleotit sayısı” ile “çift zincirli DNA'nın baz çifti sayısı” arasındaki dil farkına dikkat edin. Çift sarmalda karşılıklı iki baz birlikte bir baz çifti oluşturur; 1 kbp uzunluğundaki çift zincir yaklaşık 1.000 karşılıklı eşleşme konumu içerir. Bu birim protein sayısını söylemez: farklı gen uzunlukları, gen dışı bölgeler ve düzenleyici diziler aynı kromozomda yer alır. Ayrıca uzunluk ile paketlenme birbirinden farklı ölçütlerdir. DNA'nın kontur uzunluğu milimetre ölçeğinde verildiğinde kromozomun hücre dışına uzandığı söylenmez; molekülün tüm kıvrımları açılırsa erişeceği yaklaşık uzunluk anlatılır. DNA omurgasının şeker–fosfat tekrarı ve baz eşleşmesinin düzeni, bu uzun molekülün hem kararlı kalmasını hem de kopyalanırken iki zincirin ayrılabilmesini mümkün kılar. Baz eşleşmesi bu yüzden yapı bilgisi olduğu kadar replikasyonun temel mantığıdır.
1.4 Süpersarmal, nükleoid ve kromozom çeşitliliği
Slayt 10'da süpersarmal (supercoil) çift sarmalın daha üst düzeyde burulmasıdır. Gevşek dairesel DNA'da bir zincirde nick, yani tek zincir kesisi oluşturulup uç döndürülerek yeniden kapatıldığında topolojik durum değişebilir. Negatif süpersarmal çift sarmalın göreli olarak az sarılması, pozitif süpersarmal fazla sarılmasıdır; slayta göre doğada negatif biçim baskındır. DNA giraz (DNA gyrase) süpersarmal oluşumuna katılır. Kromozom, proteinlerle ilişkili süpersarmal domainler hâlinde nükleoid bölgede paketlenir. Şemadaki “nick” tüm çift zincirin kopması demek değildir; tek zincirdeki kesinin ve kapanmanın burulmayı değiştirebilmesi önemlidir.
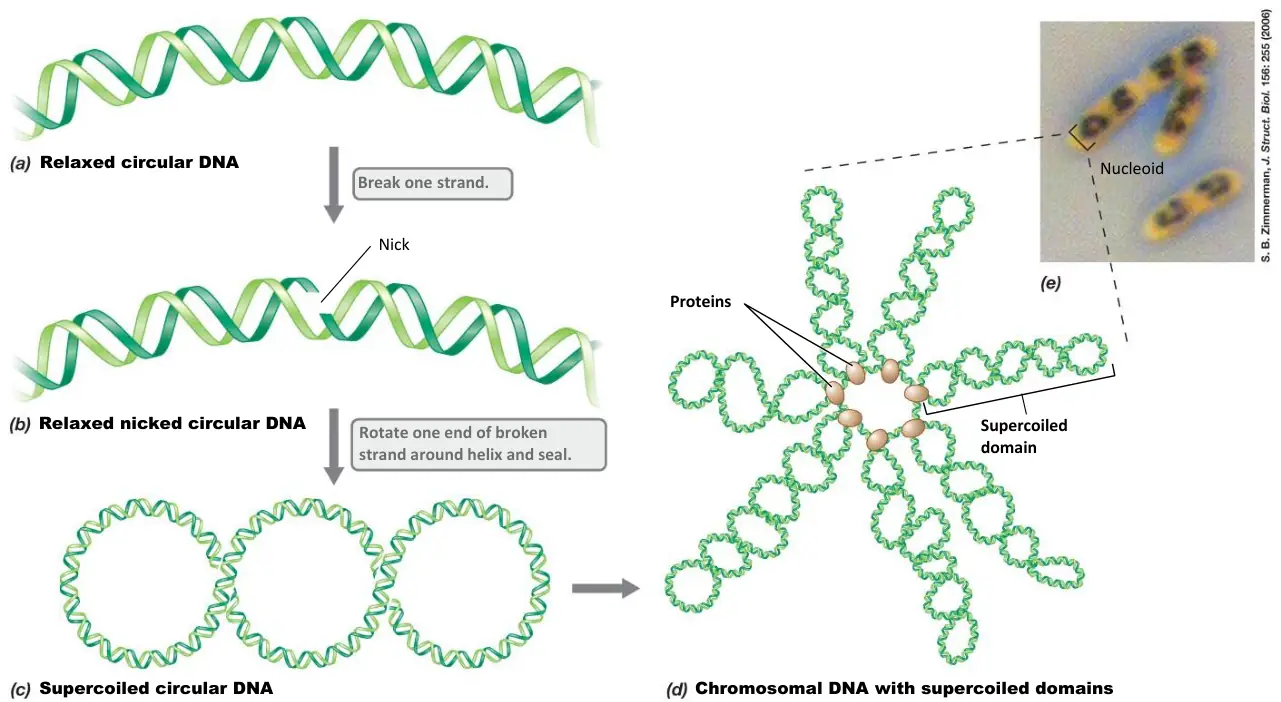
Slayt 12'ye göre bakterilerin çoğunda tek ve dairesel kromozom vardır; bu genel kural bütün bakteriler için mutlak değildir. Brucella, Leptospira interrogans, bazı Burkholderia suşları ve Vibrio cholerae için birden fazla kromozom örnekleri verilmiştir. Borrelia suşları doğrusal kromozom örneğidir. Bu istisnalar, bir bakterinin “prokaryot” olmasını kromozomunun dairesel oluşuna indirgememeyi öğretir. Slayt 13 kromozomda protein kodlayan yapısal genleri (cistron), rRNA ve tRNA genlerini, birlikte işlev gören gen kümelerini sayar. Operon, birlikte düzenlenip okunabilen genler fikrini; genomik ada (genomic island) ise belirli işlevlerle ilişkili genlerin daha geniş bir kromozomal kümesini çağrıştırır. Slaytta bu iki terim yan yana kullanılsa da eş anlamlı değillerdir; ayrım kaynak notlarında belirtilmiştir.
Slayt 11 bu genlerin RNA ürünlerini açıklamak için üç ana tür sayar. mRNA (messenger RNA) protein dizisine çevrilecek kodonları taşır; kodon üç bazlık okuma birimidir. rRNA (ribosomal RNA) proteinlerle birleşerek 70S bakteriyel ribozomun çekirdek yapısına ve protein sentezi işlevine katılır. tRNA (transfer RNA) belirli amino asitleri ribozoma taşır ve üzerindeki üç bazlık antikodonla mRNA kodonunu tanır. Bu üç RNA “aynı RNA'nın üç adı” değildir; DNA'da farklı genlerden üretilen, görevleri ayrılmış ürünlerdir. RNA genellikle tek zincirlidir, riboz içerir ve timin yerine urasil kullanır. Tek zincirli oluşu “hiç baz eşleşmesi yapmaz” demek değildir; tRNA antikodonu ile mRNA kodonu arasındaki eşleşme, RNA moleküllerinin de tamamlayıcılık kullanabildiğini gösterir. Bu nedenle slayt 8'deki A–T ve G–C eşleşmesi DNA için, RNA içeren eşleşmelerdeki A–U ise RNA için hatırlanmalıdır.
Kromozomdaki gen tiplerini ayırmak, translasyon bölümünü de kolaylaştırır. Protein kodlayan yapısal genin transkripsiyon ürünü mRNA olarak ribozomda çevrilir; rRNA ve tRNA genlerinin ürünleri ise işlevsel RNA olarak görev yapar. Dolayısıyla “gen ifadesi” her zaman proteinin doğrudan üretilmesi değildir. Operon kavramında da birden fazla genin birlikte kontrol edilmesi, ürünlerin her zaman tek bir büyük protein hâline geldiği anlamına gelmez. Genlerin ortak düzenlenmesi ve ürünlerin ayrı işlev görmesi aynı anda mümkün olabilir. Genomik ada ise bu denetim biriminden daha geniş bir bölgeyi anlatabilir. Bu kavramları ölçek sırasıyla düşünün: birkaç bazlık kodon, işlevsel gen, birlikte düzenlenebilen gen grubu ve bütün kromozom. Ölçek büyüdükçe sorulan biyolojik soru da bir proteinin amino asit sırasından hücrenin genel uyum özelliklerine kayar.
Slayt 14'te E. coli'nin biyokimya, genetik ve bakteri fizyolojisi için model olmasının nedeni, genetik haritasının farklı yöntemlerle incelenebilmesidir. MG1655 suşunun kromozomu konjugasyon, transdüksiyon, moleküler klonlama ve dizileme kullanılarak haritalanmıştır. İlk iki yöntem yalnız gen taşınması değil, genlerin kromozom üzerindeki ilişkilerini anlamada da araçtır. Slayt 15'te gösterilen dairesel, ilmekli ve süpersarmal kromozom; 4,64 Mbp bilgisinin fiziksel karşılığıdır. Bu nedenle kromozom “tek daire” diye şemalaştırılsa da hücre içinde büyük, düz bir çember şeklinde durmaz.
Haritalama yöntemlerinin bir arada anılması tarihseldir ve öğreticidir. Gen aktarımına bakarak bazı genlerin birlikte veya ayrı geçtiği anlaşılabilir; moleküler klonlama seçilen parçanın ayrıntılı incelenmesini, dizileme ise bazların doğrudan okunmasını sağlar. Bunlar birbirinden bağımsız dört farklı “kromozom türü” değil, aynı kromozoma yöneltilen farklı sorulardır. E. coli modelinden elde edilen düzen, başka bakterilerdeki tüm kromozom biçimlerinin E. coli ile aynı olduğu iddiasına çevrilmemelidir; slayt 12'nin çoklu ve doğrusal kromozom örnekleri bunun sınırını gösterir. Ayrıca süpersarmal paketlenme DNA'yı erişilemez bir top hâline getirmez. Hücrenin çoğalma ve gen ifadesi için DNA'nın belirli bölgelerine erişmesi gerekir. Nükleoidin düzenlenmesi, sığdırma ile işlevsel erişim arasında dinamik bir ilişki kurulmasına yardım eder. Bu nokta replikasyon çatalının neden DNA'nın yerel olarak açılmasına ihtiyaç duyduğunu da açıklar.
Bir direnç belirtecinin kromozomda mı plazmidde mi bulunduğu, aktarım olasılığını yorumlarken önemlidir. Kromozom ve plazmid farklı genetik öğelerdir; ikisi de bakteri fenotipini etkileyebilir.
- Nükleotitler fosfodiester bağlarıyla yönlü DNA zinciri oluşturur.
- Tamamlayıcı, ters yönlü iki zincir çift sarmalı kurar.
- DNA süpersarmal ve domainler hâlinde nükleoidde paketlenir.
- Genler gerektiğinde ifade edilir ve ürünleri fenotipe katkı verir.
Genotip neyi, fenotip neyi anlatır?
Genotip genetik düzeni; fenotip genotip ile çevrenin etkileşmesi sonucu gözlenen özelliği anlatır.
Nükleotidin üç bileşeni nedir?
Fosfat, pentoz şeker ve azotlu baz.
DNA ve RNA şekerleri hangi adları alır?
DNA'da deoksiriboz, RNA'da riboz.
DNA'daki tamamlayıcı baz çiftleri hangileridir?
A–T ve G–C.
Süpersarmal DNA neden önemlidir?
Uzun kromozomun hücre içinde paketlenmesine ve DNA topolojisinin düzenlenmesine katkı verir.
2. Bilginin akışı: replikasyon, transkripsiyon ve translasyon
Kaynak slaytlar: 16–35
2.1 Üç ayrı işlem, üç ayrı ürün
Slayt 16'nın merkezî dogma (central dogma) anlatımında DNA genetik bilgiyi taşır; DNA'dan DNA oluşumu replikasyon, DNA'dan RNA oluşumu transkripsiyon, mRNA'dan polipeptit oluşumu translasyon olarak sıralanır. mRNA kodlanan polipeptidin baz sırasını taşır. tRNA amino asitleri ribozoma getirir; rRNA ise ribozomun yapısal ve işlevsel bileşenidir. Aynı “kopyalama” sözcüğü üç işlem için kullanılmamalıdır: replikasyon genomu çoğaltır, transkripsiyon seçili bir genin RNA ürününü oluşturur, translasyon nükleotit dilini amino asit dizisine çevirir. Hücre her bölünmeden önce genomu kopyalamak zorundadır; fakat bütün genleri aynı anda ve aynı düzeyde RNA'ya çevirmek zorunda değildir.
| İşlem | Kalıp | Ana ürün | Bu bölümde ayırt edici nokta |
|---|---|---|---|
| Replikasyon | DNA'nın iki ebeveyn zinciri | İki çift zincirli DNA | Tüm kromozomun çoğaltılması, yarı korunumlu ürün |
| Transkripsiyon | Bir gen için DNA'nın tek kalıp zinciri | RNA | Promotordan terminatöre, genlere göre farklı hız |
| Translasyon | mRNA kodonları | Polipeptit | tRNA antikodonu ve ribozomla amino asit sıralama |
2.2 Replikasyon çatalı ve zincirlerin yönü
Slayt 17'de DNA polimerizasyonu, eski zincirin dizisinin yeni zincire kılavuzluk etmesi olarak tanımlanır. Sentez daima 5′→3′ yönündedir. Slayt 18'e göre bakteri kromozomunda replikasyon bir başlangıç noktasında (origin, ori) başlar ve iki replikasyon çatalı (replication fork) ters yönlere ilerler. Yeni çift sarmalların her birinde bir eski, bir yeni zincir bulunması yarı korunumlu (semiconservative) replikasyon adını açıklar. Buradaki “eski zincir korunur” tüm çift sarmalın değişmeden kalması anlamına gelmez; her ürünün bir ebeveyn zincir içermesi demektir.
Çatalda kalıplar ters yönlü olduğu hâlde polimeraz yalnız 5′→3′ sentez yapabildiğinden iki yeni zincir aynı biçimde üretilemez. Öncü zincir (leading strand) çatalın açılma yönüyle uyumlu olarak sürekli, geciken zincir (lagging strand) ise Okazaki parçaları hâlinde kesintili sentezlenir. Her Okazaki parçası da 5′→3′ uzar. “Geciken” sözcüğü sentezin ters yönde yapıldığını değil, parçalı organizasyonu anlatır. Bu yüzden “öncü 5′→3′, geciken 3′→5′” ifadesi yanlıştır.
Slayt 23'te helikaz (helicase) çift sarmalı açarak replikasyon çatalını oluşturur; çizimde ATP kullanımının ADP ve inorganik fosfata dönüşmesi gösterilir. Helikazın görevi zincirleri ayırmaktır; yeni bazları zincire eklemek DNA polimerazın görevidir. İki zincir ayrıldıkça açılan bölge enzimlerin kalıba erişmesini sağlar. Çatal şekli mekanizmayı iki kola ayırdığı için öncü ve geciken zinciri yalnız isim olarak değil, kalıp yönüyle açıklamaya yarar.
2.3 Enzimlerin iş bölümü
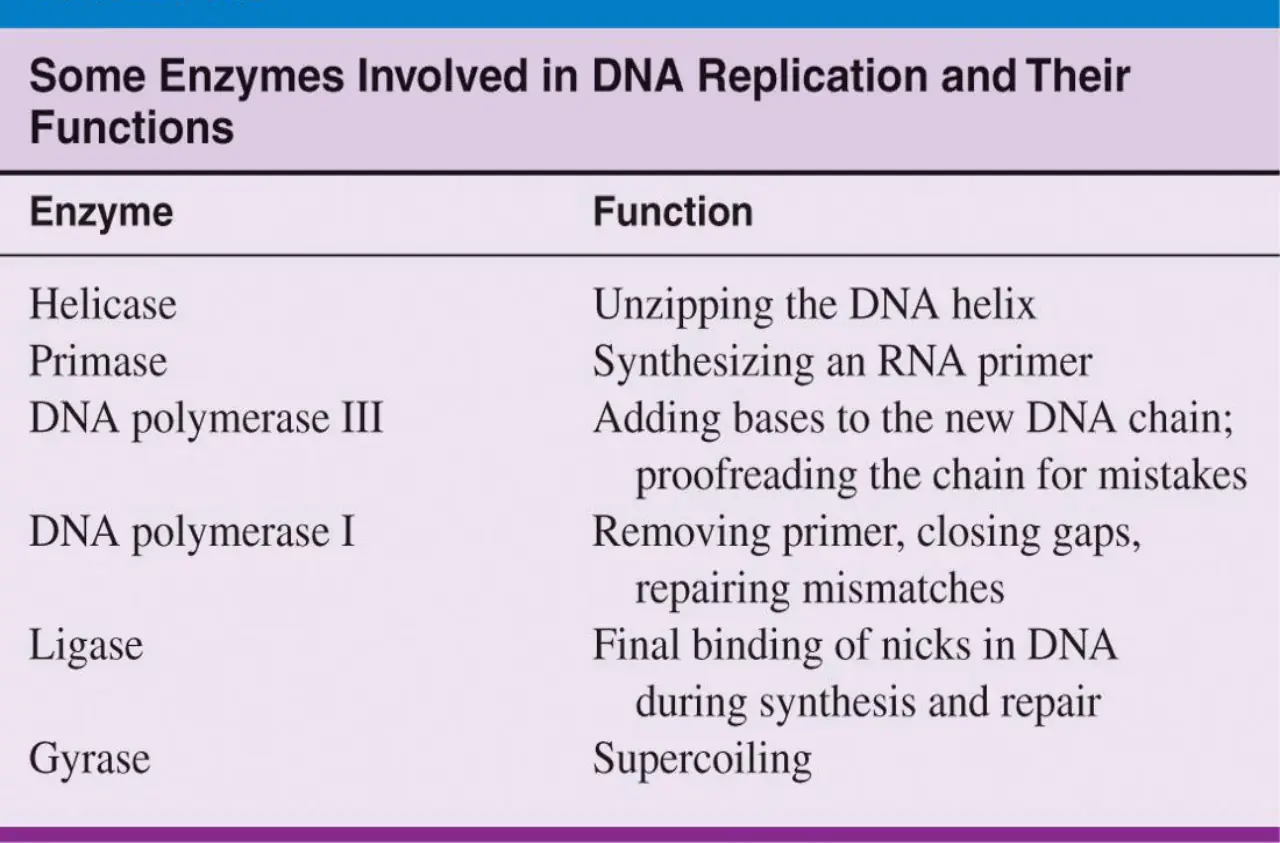
Slayt 19, E. coli'de DNA polimeraz I–V bulunduğunu bildirir. Kromozom çoğaltımının başlıca enzimi büyük bir kompleks olan DNA polimeraz III'tür. DNA polimeraz I RNA primerinin uzaklaştırılması, boşlukların doldurulması ve onarım işlevleriyle ilişkilidir. Polimerazlar dNTP ekler, fakat sıfırdan zincir başlatamaz; bir kalıp ve serbest 3′-OH içeren primer gerekir. Primaz (primase) kalıba tamamlayıcı kısa RNA primerini üretir; slayt 20 bu başlangıç ucunu çizimle gösterir. Önce primer, sonra DNA uzaması gelir; ters sıra mümkün değildir.
Slayt 21'de nükleazlar (nucleases) fosfodiester bağını kırarak DNA'yı parçalar. Endonükleaz zincirin iç kısmında kesim başlatabilir; ekzonükleaz uçtan nükleotit çıkarır. 3′ ve 5′ ekzonükleaz ayrımı, nükleotitlerin hangi uçtan kaldırıldığına dayanır. Slayt 22'de DNA ligaz, önceden sentezlenmiş DNA zincirlerinin uçları arasında fosfodiester bağı kurar: bir parçanın 5′ fosfatı diğerinin 3′ hidroksiline bağlanır. Böylece kesikli parçalar sürekli zincire dönüşür. Ligaz yeni uzun zinciri tek başına sentezlemez; var olan parçalar arasındaki kesiği kapatır.
Slayt 24'te yalnız görsel olarak bulunan enzim tablosu, iş bölümünü özetler: helikaz açar, primaz RNA primerini yapar, polimeraz III yeni DNA'yı uzatır ve hata düzeltmeye katılır, polimeraz I primeri uzaklaştırıp boşluğu doldurur, ligaz son kesiği kapatır, giraz süpersarmal topolojisini düzenler. Tablo, görevleri sıraya koymak için yararlıdır; aynı anda farklı noktalarda gerçekleşebilen olayları tek tek, bütün genom boyunca birbirini bekleyen işler gibi düşünmemek gerekir.
- Ori'den çıkan çatallarda helikaz çift sarmalı açar; giraz DNA topolojisini yönetir.
- Primaz, yeni zincirlerin başlangıcı için RNA primerleri oluşturur.
- Polimeraz III kalıbı 3′→5′ okurken yeni DNA'yı 5′→3′ uzatır.
- Öncü zincir sürekli, geciken zincir Okazaki parçaları hâlinde ilerler.
- Polimeraz I primerleri uzaklaştırıp boşlukları DNA ile tamamlar.
- Ligaz kalan kesikleri kapatır; hata kontrolü kopyanın doğruluğunu destekler.
Slayt 25 replikasyonun yüksek doğruluğunu proofreading, yani yeni eklenen bazın kontrolüyle ilişkilendirir. Yanlış eşleşme hidrojen bağı düzenini bozduğu için polimeraz hatayı tanıyabilir; slayt hücresel mutasyon/hata oranı için baz başına 10⁻⁸–10⁻¹¹ aralığını verir. Bu sayı “her hücrede her zaman şu kadar mutasyon olur” biçiminde okunmamalıdır; baz başına bir olasılık ve bağlama bağlı bir tahmindir. Proofreading prokaryot, ökaryot ve çeşitli viral DNA replikasyon sistemlerinde bulunabilir. Daha sonra görülecek mutasyonların bir kısmı bu denetimden kaçan değişikliklerdir.
Replikasyon çatalını çizerek çalışırken önce kalıp zincirlerin yönünü, sonra yeni zincirlerin yönünü işaretleyin. Tek bir çatal için iki yeni zincirin 3′ uçları farklı konumlarda görünür; çünkü polimeraz uzamayı yalnız o uçtan yapar. Öncü zincirde polimeraz çatal açıldıkça aynı yönde ilerleyebilir. Geciken zincirde yeni açılan kalıp bölümü için tekrar primer gerekir; yeni Okazaki parçası bir önceki parçaya doğru uzar. Böylece parçaların her biri 5′→3′ üretildiği hâlde çatal ilerlemesinin genel yönüyle ters tarafta kalır. “Sürekli” ve “kesintili” ayrımı DNA polimerazın kimyasındaki farklılık değildir; antiparalel kalıpların aynı çatalda yerleşiminden doğan örgütlenme farkıdır. Yarı korunumlu son ürün ile bu iki sentez biçimi de farklı düzeyleri anlatır: ilki yavru molekülün hangi eski zinciri içerdiğini, ikincisi yeni zincirin çatalda nasıl yapıldığını sorar.
Enzim tablosunu ezberlerken bir kesik türünün kim tarafından işlendiğini de takip edin. Helikaz zincirleri ayırınca bazlar kalıp olarak açığa çıkar; primazın yaptığı RNA primeri, polimerazın gereksindiği 3′-OH ucunu sağlar. Polimeraz III yeni dizinin büyük bölümünü kurar. Polimeraz I'in primeri uzaklaştırıp boşluğu doldurması, kesintili zincirde çok sayıda başlangıç parçası bulunduğu için özellikle görünürdür. Ligazın görevi, doldurulmuş iki DNA parçası arasında hâlâ duran son kimyasal kesiği gidermektir. Nükleazların endo/ekzo ayrımı da “bir şeyi keserler” ezberinin ötesine geçer: içten bir kesim ile uçtan nükleotit çıkarma farklı substrat konumlarına bağlıdır. Giraz ise sıraya bir ekleme enzimi olarak değil, açılma ve paketlenme sırasında DNA'nın burulma durumunu yöneten enzim olarak yerleştirilmelidir. Bu iş bölümü, tek bir enzimin neden bütün replikasyon görevlerini üstlenemediğini açıklar.
Polimeraz, 3′-OH ucundan yeni nükleotit ekleyerek diziyi uzatır; ligaz, mevcut DNA parçalarının uçları arasındaki fosfodiester kesiğini birleştirir. “Ligaz primeri üretir” ya da “primaz kesiği kapatır” yanlış eşleştirmelerdir.
2.4 Transkripsiyon: DNA dizisinden RNA
Slayt 26–27'ye göre RNA polimeraz, belirli bir gen için iki DNA zincirinden yalnız birini kalıp alarak RNA sentezler. Enzim promotor (promoter) denilen başlangıç bölgesini tanır; sentez bir terminatör (terminator) dizisinde sona erer. DNA'daki timin yerine RNA'da urasil kullanılır. DNA replikasyonu tüm kromozomu çoğaltırken, transkripsiyon tek bir gen kadar küçük bir birimi kapsayabilir. Bu seçicilik hücrenin farklı genleri farklı hızlarda okumasını sağlar. Dolayısıyla bir gendeki promotor aktivitesi, genin ürün miktarını etkiler.
Slayttaki “DNA ATGCAT ise mRNA UACGUA” örneği ancak verilen DNA kalıp zincir olarak okunursa tamamlayıcılık gösterir. Yönler belirtilmediğinde iki dizinin uçları karşılaştırılamaz. Örneğin kalıp 3′-ATGCAT-5′ ise RNA 5′-UACGUA-3′ olur. Kodlayan DNA zinciri verilseydi RNA onunla aynı sırayı taşır, T yerine U yazılırdı. Bu ayrım, dizileme sorularında en sık karıştırılan basamaktır. Terminatörün rolü de “RNA'yı değiştirmek” değil, sentezin uygun yerde durmasını sağlamaktır.
Bir transkripsiyon sorusunda önce “DNA dizisi kalıp mı, kodlayan zincir mi?” ibaresini bulun. Kalıp verilmişse RNA'yı baz baz tamamlayıcı yazın ve zincirlerin ters yönlü olduğunu belirtin. Kodlayan zincir verilmişse aynı 5′→3′ sırayı RNA için koruyup T harflerini U'ya dönüştürün. Bu iki işlem aynı örnekte farklı görünen cevaplar üretir; yanlış olan baz eşleşmesi değil, hangi DNA zincirinin verildiğini söylememektir. Promotorun bir gen için seçilen kalıp zincirin yönünü belirlemesi de bu hesapla bağlantılıdır. RNA polimeraz DNA'nın herhangi bir ucundan rastgele başlamaz: tanıdığı başlangıç bölgesinin konumu ve yönü, hangi zincirin okunacağını belirler. Bir kromozomun farklı genlerinde kalıp olarak farklı DNA zincirleri kullanılabilir. Böylece “bir gen için bir zincir” ifadesi, “bakterinin bütün genleri için hep aynı zincir” biçiminde yanlış genellenmemelidir.
2.5 Genetik kod, ribozom ve protein katlanması
Slayt 28'de genetik kod üç bazlık kodon (codon) ile amino asit eşleşmesi olarak tanımlanır. Dört bazın üçlü kombinasyonları 64 kodon verir; bunlar yaklaşık 20 amino asidi kodlar ve durma sinyalleri içerir. Bir amino aside birden fazla kodonun karşılık gelmesi kodun dejenerasyonudur. tRNA üzerindeki antikodon (anticodon) mRNA kodonuna tamamlayıcıdır; tRNA aynı zamanda uygun amino asidi taşır. Kodon mRNA üzerinde, antikodon tRNA üzerinde olduğundan, iki sözcük aynı üçlü dizi için kullanılmaz.
Slayt 29'da protein kodlayan diziler ekson (exon), kodlamayan parçalar intron (intron) olarak anılır; bakteride intron olmadığı söylenir. Bu cümle bakteriyel genlerin çoğunda ökaryot tipi intronlu düzenin bulunmamasını öğretmek için yararlı olsa da mutlak değildir; istisna kaynak notlarında açıklanmıştır. Cistron, belirli bir polipeptidi kodlayan DNA bölümü anlamında kullanılır. Slayt 13'teki rRNA ve tRNA genleri düşünüldüğünde “bütün genler polipeptit kodlar” çıkarımı yapılamaz. Cistron ve gen kavramları bu slaytta yakın kullanılsa bile bir genin işlevsel RNA kodlayabileceği akılda tutulmalıdır.
Slayt 30'a göre AUG başlangıç kodonu, UAA, UAG, UGA dur kodonlarıdır. Okuma çerçevesi (reading frame) üçlülerin hangi bazdan başlanarak gruplanacağını belirtir. Bir baz öne veya arkaya kaymak sonraki kodonların hepsini değiştirir. Açık okuma çerçevesi (open reading frame, ORF) aynı çerçevede AUG'dan bir dur kodonuna kadar uzanan kodon dizisi olarak sunulur. Dizide AUG görmek tek başına işlevsel proteini kanıtlamaz; doğru çerçeve ve bitiş birlikte değerlendirilmelidir.
Slayt 31'de ribozom protein sentezi yeridir: prokaryotik ribozom 30S ve 50S alt birimlerden kurulan 70S kompleksidir; rRNA ve protein içerir. E. coli için 52 ayrı ribozomal protein bilgisi verilir. S değerleri sedimentasyon katsayılarıdır; bu yüzden 30 ve 50 aritmetik olarak 80S diye toplanmaz. Hücre başına çok sayıda ribozom bulunması, aynı bilgi akışının çok sayıda protein ürünü oluşturabilmesini sağlar.
Slayt 32 translasyonu başlama (initiation), uzama (elongation) ve sonlanma (termination) olarak üçe ayırır. Başlangıçta ribozom alt birimleri mRNA ve başlangıç kodonuyla düzenlenir. Uzamada ribozom mRNA boyunca ilerler, tRNA'lar amino asit getirir ve polipeptit büyür. Dur kodonuna gelindiğinde sentez sonlanır ve polipeptit bırakılır. Slayt 33'te bunun ardından polipeptit kararlı üç boyutlu biçime katlanır: ikincil, üçüncül ve birden fazla zincirin birlikteliğinde dördüncül yapı. Bazı polipeptitler kendiliğinden katlanabilir; katlanma, amino asit dizisinin işlevsel ürüne dönüşmesinde ayrı bir basamaktır. Yanlış amino asit bir enzimin etkinliğini, bağlanmasını veya kararlılığını değiştirebilir.
Okuma çerçevesini kısa bir dizi üzerinde elle kurmak yararlıdır. Aynı harf dizisini ilk, ikinci veya üçüncü bazdan başlayarak üçlü grupladığınızda başka kodonlar oluşur. Bu nedenle başlangıç kodonunun yerinin seçilmesi, sonraki tüm amino asit sırasını etkiler. Bitiş kodonu da yalnız “protein durur” işareti değildir; hangi çerçevede bulunduğu önemlidir. Çerçeve kayması mutasyonlarının güçlü sonuç verebilmesinin nedeni buradadır: tek bazlık değişim, yeni bir kodonun yanında kendisinden sonraki çok sayıda kodonun sınırını da değiştirebilir. Ribozom ve tRNA iş bölümü ise nükleotit dilinden amino asit diline geçişi sağlar. Ribozom mRNA'yı konumlandırır, tRNA üçlü eşleşmeyle doğru amino asidi getirir, büyüyen zincir diziyi izler. Katlanma basamağı eklendiğinde “DNA dizisi → protein işlevi” arasındaki yolun neden tek adımlı olmadığı görünür: dizi, okuma çerçevesi, amino asit sırası ve üç boyutlu yapı ardışık olarak değerlendirilmelidir.
- RNA polimeraz promotoru tanır ve DNA'nın bir zincirini kalıp alır.
- RNA, terminatöre kadar sentezlenir; mRNA kodonları ortaya çıkar.
- Ribozom başlangıç kodonunda kurulur, tRNA antikodonları kodonları tanır.
- Amino asitler sırayla eklenir; dur kodonunda polipeptit salınır.
- Polipeptit katlanarak işlevsel yapı kazanır.
2.6 Gen ifadesinin düzenlenmesi
Slayt 34–35, bütün proteinlerin her zaman aynı miktarda gerekmediğini açıklar. Yaşam için sürekli gereken bazı proteinlerin genleri konstitutif (constitutive) olarak ifade edilir. Başka genlerin ürünleri ancak belirli çevre koşullarında yararlı olduğundan düzenlenir; bu, enerji ve hücresel malzeme tasarrufu sağlar. Baskılanma (repression) bir ürünün ifadesinin engellenmesi veya azaltılmasıdır. İndüksiyon (induction) ifadenin gereksinim veya çevresel uyarı üzerine başlaması ya da artmasıdır. Burada “baskılanmış” genin silindiği anlamı çıkmaz; gen DNA'da bulunur, fakat ürün düzeyi değişmiştir. Mutasyon ise DNA dizisindeki kalıcı değişikliktir ve düzenlenmeyle aynı olay değildir.
Gen ifadesini üç ölçüm düzeyinde düşünmek bu slaytları birbirine bağlar. İlk düzeyde DNA'daki genin mevcut olup olmadığı sorulur; bu, hücrenin ne yapabilecek potansiyele sahip olduğunu gösterir. İkinci düzeyde ilgili mRNA'nın üretilip üretilmediği sorulur; bu, transkripsiyonun o koşulda aktif olup olmadığını anlatır. Üçüncü düzeyde protein miktarı ve işlevi değerlendirilir; bu da fenotipe daha yakındır. Bu üç düzey her zaman aynı yanıtı vermez. Örneğin gen kromozomda dururken baskılanma nedeniyle mRNA az olabilir; mRNA üretilse de protein üretimi ve katlanması ayrıca önemlidir. “Konstitutif” ifadesi de bütün koşullarda değişmeyen tek bir sabit molekül sayısı demek değildir; ürünün temel gereksinim nedeniyle sürekli ifade edilmesini anlatır. İndüksiyonla üretilen proteinin hücreye maliyeti olduğu için, yalnız gerektiğinde sentezlenmesi slayttaki enerji tasarrufu fikrini açıklar. Böylece genetik düzenleme, DNA dizisini değiştirmeden çevreye yanıt verilmesini sağlayan bir mekanizma olarak okunur.
Bir bütün olarak bu bölümde dört farklı “başlangıç” sözcüğü bulunur ve her biri başka nesneye aittir. Ori, kromozomal DNA replikasyonunun başlangıç yeridir. Primer, DNA polimerazın uzatacağı yeni zincirin 3′-OH ucunu sağlar. Promotor, RNA polimerazın bir geni yazmaya yöneldiği DNA bölgesidir. AUG, ribozomun mRNA üzerindeki çeviri çerçevesini başlattığı kodondur. Bu terimler benzer işlevli görünse de birini diğerinin yerine koymak bilgi akışındaki basamakları karıştırır. Aynı disiplin bitişlerde de gerekir: replikasyonun tamamlanması, transkripsiyon terminatörü ve translasyondaki dur kodonu farklı moleküler olaylara aittir. Soruda verilen molekülü önce belirlemek, doğru başlangıç veya bitiş sinyalini seçmenin en hızlı yoludur. DNA üzerinde bir başlangıç bölgesi soruluyorsa bile replikasyon mu transkripsiyon mu olduğu ayrıca anlaşılmalıdır. Bu ayrım, uzun mekanizma sorularında tek sözcükten doğru işleme atlamayı önler.
| Kavram çifti | İlk kavram | İkinci kavram | Ayırıcı soru |
|---|---|---|---|
| Kodon / antikodon | mRNA üzerinde amino asit veya dur sinyali | tRNA üzerinde tamamlayıcı tanıma üçlüsü | Hangi RNA'da? |
| Başlangıç / dur kodonu | AUG ile çerçeve başlar | UAA, UAG, UGA ile çeviri biter | Protein eklenmesi başlıyor mu bitiyor mu? |
| Konstitutif / indüklenebilir ifade | Sürekli gereken ürün | Koşula göre artan ürün | Çevresel uyarı gerekli mi? |
| Baskılanma / mutasyon | İfade azalır | DNA dizisi kalıcı değişir | Dizi değişti mi? |
Dirençle ilişkili bir genin varlığını göstermek, tek başına ölçülen antibiyotik duyarlılığı fenotipini açıklamayabilir. Genin ifade düzeyi ve başka hücresel koşullar, sonucun yorumlanmasında ayrı değerlendirilir.
Bakteri ribozomu 30S ve 50S alt birimlerden oluşur; bileşik yapı 70S olarak adlandırılır. S değerleri doğrudan toplanan kütle sayıları değildir.
Yarı korunumlu replikasyon ürününde hangi zincirler bulunur?
Her yeni çift sarmalda bir ebeveyn ve bir yeni sentezlenmiş zincir bulunur.
DNA polimeraz III ile primazın görevleri nasıl ayrılır?
Polimeraz III DNA zincirini uzatır; primaz başlangıç için kısa RNA primeri üretir.
Geciken zincir hangi yönde sentezlenir?
O da 5′→3′ sentezlenir, ancak Okazaki parçaları hâlindedir.
Kodon ve antikodon nerede yer alır?
Kodon mRNA'da, tamamlayıcı antikodon tRNA'dadır.
Repression ile mutasyon arasındaki temel fark nedir?
Repression gen ifadesini azaltır; mutasyon DNA dizisini kalıcı olarak değiştirir.
3. Mutasyonlar: oluşum, sınıflandırma ve etkiler
Kaynak slaytlar: 36–50
3.1 Mutasyonun tanımı ve sonuç değişkenliği
Slayt 36'daki mutare/mutatio kökü “değiştirmek” anlamını hatırlatır. Mutasyon, genotipte kalıcı değişikliktir; mutagenez (mutagenesis) bu değişikliklerin oluşma sürecidir. Yabanıl tip (wild type) karşılaştırma için seçilen referans organizma veya suştur; mutant, bu referanstan genetik değişiklik taşıyan soy bireyidir. Mutajen (mutagen) mutasyonu indükleyen fiziksel ya da kimyasal etkendir. “Yabanıl tip” her zaman en sağlıklı veya en yaygın tür anlamına gelmez; deneyin referansına bağlı addır. Mutasyon kendiliğinden oluşabileceği gibi mutajen etkisiyle de ortaya çıkabilir. Her mutasyonun seçilen fenotipte görünür bir etkisi olması gerekmez.
Slayt 37 tek baz değişiminin zararlı, yararlı veya etkisiz olabileceğini örnekler. Orak hücreli anemi zararlı bir amino asit değişiminin, pestisit direnci ise çevreye bağlı yararın örneği olarak verilir. Bu örnekler bakteriyle sınırlı değildir; aynı genetik ilkeyi gösterir: sonuç, değişimin hangi dizide olduğuna, protein işlevine ve çevredeki seçilim baskısına bağlıdır. Çalışmaların büyük bölümünün çok küçük etkiler bildirdiği notu, “her mutasyon dramatik fenotip yapar” genellemesini engeller. Direnç bağlamında bir değişimin “yararlı” oluşu da bakterinin bulunduğu ortamda antibiyotik veya başka baskı bulunmasına bağlıdır.
Slayt 38 mutasyon hızı (mutation rate) için yabanıl tipten belirli bir mutant tipe değişim sıklığını verir ve bunu hücre bölünmesi, gamet veya replikasyon turu gibi biyolojik birim başına ifade eder. Bakteri bağlamında hücre bölünmesi veya replikasyon turu uygun birimlerdir. Mutasyonlar çok seyrek olduğundan büyük, neredeyse aynı DNA arka planında saptanmaları güçtür. Slaytta kendiliğinden mutasyon için bölünme başına yaklaşık 10⁻⁶–10⁻⁹ nükleotit aralığı verilir ve çoğunun DNA replikasyonu sırasında oluştuğu belirtilir. Bu aralığı slayt 25'teki “baz başına kopyalama hatası” ile otomatik eşitlemeyin: tanımlar, ölçüm yöntemleri ve ölçülen son ürün farklı olabilir.
“Hız”ı yorumlarken pay ile paydayı yazmak kavramı berraklaştırır. Sayılan olay belirli bir genin belirli bir mutant biçime geçişi mi, genomun herhangi bir konumundaki değişim mi, yoksa eklenen her bazın hatası mı? Payda tek baz, tek hücre bölünmesi veya tek replikasyon turu olabilir. Birim söylenmeden iki oran büyüklük olarak karşılaştırılamaz. Slayt 38'in “nadir olay” vurgusu deney tasarımını da açıklar: çok sayıda hücre incelenmediğinde değişim görülmemesi, mutasyonun biyolojik olarak imkânsız olduğu anlamına gelmez. Aynı şekilde dirençli koloninin görülmesi, o hücredeki değişimin tam ne zaman oluştuğunu yalnız başına söylemez. Direnç fenotipi saptandıktan sonra genetik değişimin kaynağı ve oluşma zamanı ayrı sorulardır. Bu yaklaşım, mutasyonla yatay aktarımın neden aynı “yeni özellik” sonucuna rağmen farklı mekanizmalar olarak çalışıldığını da gösterir.
Mutasyonun seyrek olması, oluştuğunda etkisiz olacağı anlamına gelmez. Tersine, güçlü fenotip veren bir mutasyonun sık oluştuğunu da yalnız etkisine bakarak söyleyemezsiniz.
3.2 Değişim mekanizması: substitüsyon ve indel
Slayt 39 iki sınıflandırma düzeyi kurar: mekanizmaya göre substitüsyon, insersiyon ve delesyon; protein sonucuna göre sessiz, missense ve nonsense. Aynı mutasyonu iki eksende birden adlandırmak mümkündür: örneğin tek baz substitüsyonu bir missense değişiklik olabilir. Slayt 40'a göre substitüsyon bir bazın başka bazla yer değiştirmesidir; tek noktada gerçekleşen değişiklik nokta mutasyonu (point mutation) örneğidir. Transition aynı baz ailesi içinde, pürin↔pürin (A↔G) veya pirimidin↔pirimidin (C↔T) değişimidir. Transversion pürin↔pirimidin değişimidir. Bir baz değişiminin proteini etkileyip etkilememesi, yeni kodonun neye dönüştüğüne bağlıdır; transition mutlaka sessiz, transversion mutlaka zararlı değildir.
Slayt 41 insersiyon (insertion) ile bir veya daha fazla nükleotit çiftinin eklenmesini, delesyon (deletion) ile çıkarılmasını anlatır; ikisine birlikte indel denir. Eklenen veya çıkarılan baz sayısı üç ve katları değilse kodon sınırları kayar; buna çerçeve kayması (frameshift) denir. Okuma çerçevesi değişince değişim noktasından sonraki çok sayıda kodon ve olası dur kodonunun yeri etkilenebilir. Üç bazlık ekleme veya çıkarma ise çerçeveyi korur, fakat bir amino asidi ekleyip çıkarabilir; bu yüzden “frameshift yoksa etkisizdir” denemez. Mekanizma ile sonuç ayrımı burada özellikle öğreticidir.
Sınıflandırmayı bir örnek üzerinden iki adımda yapın. İlk adımda DNA dizilerini yan yana koyup hangi fiziksel değişim olduğunu belirleyin: bir baz başka baz olmuşsa substitüsyon; fazladan baz varsa insersiyon; eksik baz varsa delesyon. İkinci adımda kodlanan mRNA'yı üçlüler hâlinde okuyup protein sonucunu belirleyin. Aynı amino asit çıkarsa sessiz, farklı amino asit çıkarsa missense, yeni dur kodonu çıkarsa nonsense denir. İndelde üçlü sınırlar kayıyorsa frameshift ayrıca belirtilir. Böyle ilerlemek “transition = sessiz” gibi yanlış ezberleri önler. Transition ve transversion, hangi baz ailesinin değiştiğini söyler; protein sonucuna ilişkin garanti vermez. İki farklı substitüsyonun aynı kodonun farklı konumlarında gerçekleşmesi bile farklı protein sonuçları doğurabilir. Bu yüzden mutasyon adlandırmasında DNA dizisinin yönü, değişimin yeri ve çevrilen okuma çerçevesi birlikte gereklidir.
| Değişim | DNA düzeyinde olan | Okuma çerçevesi | Olası protein sonucu |
|---|---|---|---|
| Substitüsyon | Bir baz başka baz olur | Genellikle korunur | Sessiz, missense veya nonsense |
| Tek baz insersiyonu | Bir baz eklenir | Kayar | Aşağıdaki kodonlar değişebilir |
| Tek baz delesyonu | Bir baz çıkar | Kayar | Aşağıdaki kodonlar değişebilir |
| Üç bazlık indel | Üç baz eklenir veya çıkar | Korunur | Bir amino asit eklenir veya çıkarılabilir |
3.3 Protein ürününe göre sessiz, missense ve nonsense
Slayt 42'nin görselinde DNA ve karşılık gelen mRNA düzeyleri aynı örnekte gösterilir. Kalıp DNA TTC→TTT değişirken mRNA AAG→AAA olur; iki mRNA kodonu da lizin kodladığı için sessiz mutasyon (silent mutation) ortaya çıkar. Bu, genetik kodun bir amino aside birden fazla kodon atayabilmesinin sonucudur. Sessiz mutasyonun bu slayttaki anlamı amino asit dizisinin değişmemesidir; değişimin her hücresel durumda kesinlikle hiçbir biyolojik sonucu olmadığı yönünde daha geniş bir iddia değildir. Aynı çizimde ATC→mRNA UAG dur kodonu oluşturan nonsense; TCC→mRNA AGG arjinin ve TGC→mRNA ACG treonin veren missense örnekleri karşılaştırılır.
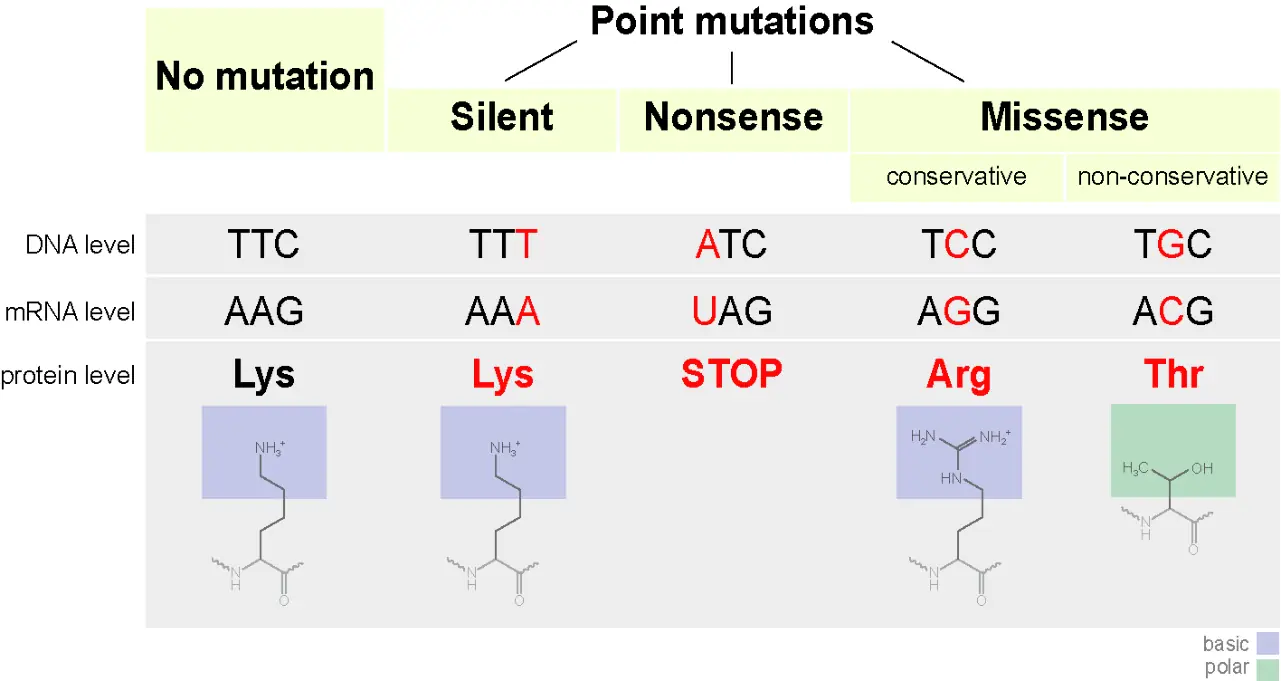
Slayt 43'e göre missense mutasyon, proteindeki bir amino asidin değişmesidir; tek bir nokta değişimi veya birden fazla değişim bunu oluşturabilir. Etkisi önceden yalnız isme bakılarak belirlenemez. Orak hücreli anemi, belirgin işlevsel etki örneği olarak yeniden anılır. Slayt 44 missense sonuçlarını konservatif ve nonkonservatif diye ayırır. Konservatif değişimde yeni amino asidin kimyasal özellikleri eskisine benzer; nonkonservatif değişimde belirgin biçimde farklıdır ve protein işlevi kaybolabilir. Yine de “konservatif = kesin zararsız” değildir: protein içindeki konum da önemlidir. Slayt 45'te nonsense mutasyon, bir kodonu dur kodonuna çevirir ve erken biten, eksik polipeptit oluşturur. Erken bitişin proteinin ne kadarını kaybettirdiği, dur sinyalinin konumuna bağlıdır.
Konservatif ve nonkonservatif missense ayrımında amino asitlerin özellikleri bir ilk tahmin sağlar: benzer özellikli iki amino asit yer değiştirirse yapısal bozulma olasılığı daha düşük düşünülebilir; çok farklı özellikler taşıyan iki amino asitte daha büyük etki beklenebilir. Fakat protein işlevi yalnız amino asidin genel sınıfına bağlı değildir. Değişen konum aktif bölgedeyse, bağlanma yüzeyindeyse veya katlanmayı koruyan kritik bir noktadaysa küçük görünen bir değişim de önemli sonuç doğurabilir. Buna karşılık belirgin farklı bir amino asit değişimi, proteinin daha esnek bir bölgesinde bulunursa beklenenden daha az görünür etki yapabilir. Slayt 37'nin “çoğu mutasyon küçük etkili olabilir” uyarısını, slayt 44'ün kimyasal benzerlik ayrımıyla birlikte okumak gerekir. Protein sonucu sınıflaması değişimin adını verir; klinik ya da biyolojik etkinin büyüklüğünü kesin hesaplamaz. Etkiyi anlamak için değiştirilmiş gen ürününün gerçek işlevine bakmak gerekir.
| Sonuç türü | Kodon/protein ilişkisi | Kısa yorum |
|---|---|---|
| Sessiz | Kodon değişir, amino asit aynı kalır | Dejenerasyon nedeniyle olabilir |
| Missense | Kodon farklı amino asit getirir | Etki konum ve amino asit özelliklerine bağlıdır |
| Nonsense | Kodon dur sinyaline dönüşür | Polipeptit erken sonlanır |
| Frameshift | Üçlü okuma düzeni kayar | Sonraki çok sayıda kodon değişebilir |
“Substitüsyon” DNA'da ne olduğunu, “missense” ise proteinde ne sonuç verdiğini söyler. Tek olay bu iki adı aynı anda taşıyabilir.
3.4 Diğer mutasyonlar ve mutajenler
Slayt 46 dört terim daha ekler. Letal mutasyon, yaşamsal bir işlevi bozup hücreyi öldürebilir. Baskılayıcı mutasyon (suppressor mutation), ilk mutasyondan farklı DNA konumunda oluşarak mutant fenotipi geri çevirebilir; ilk DNA değişiminin kendisini zorunlu olarak silmez. Koşullu letal mutasyon (conditional lethal mutation) bazı çevre koşullarında yaşama izin verirken başka koşullarda ölümcül olabilir. İnversiyon (inversion), bir DNA parçasının ters yönde yeniden yerleşmesidir. Slayt 47 görseli nokta mutasyonunu inversiyonla karşılaştırır: ilkinde yerel baz değişimi, ikincisinde daha büyük DNA segmentinin yön değiştirmesi söz konusudur. İnversiyonun etkisi, kırılma noktalarının genleri veya düzenleyici bölgeleri kesip kesmemesine göre değişebilir.
Slayt 48 kimyasal mutajenler olarak nitroz asit, akridin boyaları, bazlara benzeyen nükleozit analogları, duman/kurumla ilişkili benzo(a)piren ve aflatoksini listeler. Bu farklı maddeler tek bir ortak “mutasyon tipi” demek değildir; ortak yönleri DNA dizisini değişime açık hâle getirebilmeleridir. Fiziksel mutajenler arasında slayt 49 X ışınları, gama ışınları ve UV'yi sayar. UV, bitişik timinler arasında kovalent bağlarla timin dimeri oluşumuna yol açabilir. Bu yapısal bozulma replikasyon ve transkripsiyonun ilerlemesini engelleyebilir; hasar düzeltilmeden çoğaltım sürerse dizi değişimi ortaya çıkabilir. Her ışınımı aynı mekanizmayla açıklamamak gerekir: slayt timin dimerini özellikle UV için örnekler.
- Kendiliğinden kopyalama hatası veya mutajen DNA'yı değiştirir.
- Değişim baz yer değiştirmesi, indel ya da daha büyük yeniden düzenlenme olabilir.
- Kodlanan bölgede yeni mRNA kodonları oluşabilir.
- Protein dizisi aynı kalabilir, bir amino asit değişebilir veya erken durabilir.
- İşlevsel etki çevre koşulları ve seçilimle birlikte fenotipte görünür hâle gelir.
Slayt 50 mutasyonların üç önemini vurgular. Bir genin işlevi, gendeki değişimin hangi özelliği bozduğuna bakılarak araştırılabilir. İstenen bölgede mutasyon oluşturularak uygun mutantlar üretilebilir; slayt bunu aşı geliştirme amacıyla da ilişkilendirir. Kendiliğinden mutasyonlar bakteride antibiyotik direncinin ortaya çıkmasına katkı verebilir. Ancak mutasyon “antibiyotik ihtiyaç olduğu için” yönlendirilmiş bir düzeltme değildir: var olan veya ortaya çıkan değişiklikler, antibiyotik altında seçilebilir. Gen aktarımıyla edinilen direnç ise sonraki bölümlerin ayrı mekanizmasıdır.
Mutajen listesini mekanizma listesi gibi ezberlemeyin. Slayt 48'deki kimyasal örnekler farklı moleküllerdir; slayt 49'daki fiziksel etkenler ise radyasyon türleridir. Bunların ortak sonucu DNA'da hasar veya yanlış eşleşme olasılığını artırabilmeleridir. Hasar ile kalıcı mutasyonu ayırmak gerekir: bir UV timin dimeri DNA'nın biçimini bozar ve kopyalama ile okumayı aksatabilir; kalıcı dizi değişimi, hasarın nasıl işlendiğine veya düzeltilmeden nasıl kopyalandığına bağlıdır. Ayrıca tek baz substitüsyonu gibi küçük değişim ile inversiyon gibi segment düzeyindeki yeniden düzenlenme aynı büyüklükte olaylar değildir. İnversiyon, ilgili segmentin yönünü ters çevirirken bir bazın başka baza dönüşmesi gerekmez. Bu farklı düzeyleri aynı başlık altında toplamanın nedeni hepsinin genotipi değiştirebilmesidir. Klinik bakışta ise hangisinin direnç veya başka özellik oluşturduğunu anlamak için yalnız “mutasyon var” bilgisinden daha ayrıntılı genetik inceleme gerekir.
Dirençli bir mutantın tedavi sırasında baskınlaşması, mutasyonun antibiyotik tarafından amaçlı üretildiği anlamına gelmez. Ortam, farklı genotiplerin çoğalma başarısını değiştirir; bu nedenle mutasyon ve seçilim iki ayrı olay olarak izlenir.
Silent amino asidi Sabit bırakır; Missense amino asidi Modifiye eder; Nonsense erken Nokta koyar. Bu hatırlatma protein sonucunu söyler, DNA'daki mekanizmayı değil.
Transition ile transversion arasındaki fark nedir?
Transition aynı baz ailesi içinde; transversion pürin ile pirimidin arasında yer değiştirmedir.
Bir bazlık delesyon neden sıklıkla frameshift yapar?
Üçlü kodon sınırını kaydırarak sonraki bazların farklı üçlülerde okunmasına neden olur.
Sessiz mutasyon protein dizisini nasıl etkiler?
Kodon değişse de aynı amino asit kodlandığı için amino asit dizisi değişmez.
Nonsense mutasyonun temel sonucu nedir?
Bir kodon dur kodonuna dönüşür ve polipeptit erken sonlanır.
Suppressor mutation ilk mutasyonla aynı yerde mi olmak zorundadır?
Hayır; slayttaki tanıma göre başka bir DNA konumundaki mutasyon mutant fenotipi baskılar.
4. Genetik materyalin aktarımı, plazmidler ve hareketli öğeler
Kaynak slaytlar: 51–56
4.1 Dikey ve yatay geçiş
Slayt 51'de genetik rekombinasyon (genetic recombination) genetik öğeler arasında DNA'nın fiziksel değişimiyle ilişkilendirilir ve bir organizmadan diğerine DNA geçişi de aktarım başlığına alınır. İki aktarım yönü ayrılır: dikey aktarım (vertical transfer) ebeveyn hücreden yavruya, yatay aktarım (horizontal transfer) aynı kuşaktaki ayrı hücreler arasında olur. Bakteri bölünmesiyle kromozom kopyasının yavruya geçmesi dikey örnektir. Bir bakterinin başka bakteriden plazmid edinmesi yatay örnektir. Yatay aktarımda hücre soy ağacındaki doğrudan ebeveyn olmak gerekmez; bu, yararlı genlerin popülasyonda yayılmasını hızlandırabilir. Aktarım ile rekombinasyon da ayrı basamaklardır: DNA hücreye girebilir, sonra kromozoma katılabilir veya plazmid olarak kalabilir.
| Karşılaştırma | Dikey aktarım | Yatay aktarım |
|---|---|---|
| İlişki | Ebeveyn → yavru | Aynı kuşaktan hücreler arası |
| Tipik olay | Bölünmede kromozomun kalıtılması | Transformasyon, konjugasyon, transdüksiyon |
| Yeni genetik kombinasyon | Soy boyunca taşınır | Farklı kaynaklardan DNA birleştirebilir |
4.2 Plazmidin özellikleri ve sınıfları
Slayt 52'de plazmid (plasmid) konak kromozomundan bağımsız çoğalabilen genetik öğe olarak tanımlanır. Küçük, dairesel veya doğrusal DNA biçiminde olabilir; hücredeki kopya sayısı (copy number) değişkendir. Taşıdığı genler çoğu durumda temel yaşama zorunlu değildir ama belirli koşullarda büyük avantaj sağlar. “Zorunlu değil” ifadesi bir plazmidin hiç etkisi olmadığı anlamına gelmez; antibiyotik bulunan ortamda direnç geni yaşamsal fark yaratabilir. Plazmid ile kromozom arasındaki temel ayrım, replikasyon ve kalıtım organizasyonudur; plazmid geni de hücrede ifade edilip fenotip oluşturabilir.
Slayt 53 üç önemli plazmid grubunu verir. F faktörü (fertility factor) konjugatif aktarım için gerekli işlevleri kodlayan fertilite öğesidir. R faktörü (resistance factor) aktarılabilir ilaç direnci genleri taşır. Col faktörü, diğer bakterileri öldürebilen veya baskılayabilen bakteriyosin (bacteriocin) genleri içerir. Bu adlar plazmidleri taşıdıkları işleve göre tanımlar; aynı hücrede farklı özellikler birlikte görülebilir. Slayt 54 avantaj listesini genişletir: antibiyotik, ağır metal ve UV'ye direnç; bakteriyosin ve toksin üretimi. Bu özellikler çevre değiştiğinde değer kazanır. Bakteriyosin, slaytta yakın akraba bakterilere etkili bakteri kaynaklı protein olarak açıklanır.
Slayt 55 iki uygulama verir. Genetik mühendisliğinde plazmidler vektör, yani DNA parçasını taşıyan araç olarak kullanılır. Plazmid profillemesi (plasmid profiling) bir suşun plazmid örüntüsünü karşılaştırarak genotiplemeye katkı sağlayabilir. Profil, genomun tamamını tek başına açıklamaz; ancak suşlar arasında belirli genetik öğelerin paylaşımına dair ipucu verir. Bir plazmidin laboratuvar vektörü olarak kullanılabilmesi, bağımsız çoğalabilmesi ve seçilebilir ya da izlenebilir özellikler taşımasıyla ilgilidir.
F aktarım yeteneği, R direnç, Col bakteriyosin işlevini hatırlatır. Adlar DNA'nın dairesel oluşunu değil, taşıdığı işlevsel genleri belirtir.
4.3 Hücre içi DNA hareketi
Slayt 56'da transpozon (transposon), kromozomda bir yerden başka yere veya kromozomdan plazmide geçebilen hareketli DNA öğesidir. Slayt, öğenin kopyalanıp yeni yere eklenmesini anlatır; bu replikatif transpozisyon örneğidir. Bütün transpozonların yalnız bu yolla hareket ettiği sonucu çıkarılmamalıdır; alternatif mekanizma kaynak notlarında açıklanmıştır. Hareket, bir genin içine girerek işlevi bozabilir veya bir plazmidle kromozom arasında genetik özelliklerin yer değiştirmesine katkı verebilir. Bu nedenle transpozon, hücreler arası aktarım yöntemi değil, öncelikle DNA'nın genom içindeki hareket biçimidir.
Aynı slayttaki programlanmış yeniden düzenlenme (programmed rearrangement), sessiz depolama bölgesindeki genin ifade edilebilen aktif bölgeye taşınması olarak sunulur. Böylece DNA'da önceden saklı bir alternatif yüzey özelliği ifade edilir. Neisseria gonorrhoeae, Borrelia recurrentis ve slayttaki Trypanosoma örneğinde antijenik değişim bu fikirle ilişkilendirilir. Sonuncusu bakteri değil protozoondur; burada ortak ilke antijenik varyasyondur. Mekanizmanın önemi, konağın gördüğü antijenin değişebilmesi ve genetik bilgi yer değişiminin doğrudan fenotipe yansımasıdır.
- Plazmid konak kromozomundan bağımsız çoğalır.
- Taşıdığı işlevsel gen hücrede ifade edilirse bir avantaj oluşturabilir.
- Uygun aktarım sistemi varsa DNA başka bir hücreye geçer.
- Alıcıda plazmidin korunması veya başka DNA'yla yeniden birleşmesi özelliğin sürmesini sağlar.
Plazmid bağımsız çoğalan genetik öğedir; transpozon yer değiştirebilen DNA dizisidir. Bir transpozon plazmid üzerinde bulunabilir, fakat bu yerleşim iki terimi eş anlamlı yapmaz.
Direnç geninin R plazmidinde olması, hücreler arası geçiş için bir yol açabilir. Bir transpozonun direnç genini farklı genetik öğeler arasında taşıması da bu yayılımı etkileyebilir; hangi mekanizmanın işlediği ayrı incelenmelidir.
Dikey ve yatay gen aktarımını hangi ilişki ayırır?
Dikey aktarım ebeveyn–yavru, yatay aktarım aynı kuşaktaki ayrı hücreler arasındadır.
Plazmidin kromozomdan bağımsız temel özelliği nedir?
Bağımsız replikasyon yapabilmesidir.
F, R ve Col faktörleri hangi işlevlerle ilişkilidir?
Sırasıyla konjugatif fertilite, ilaç direnci ve bakteriyosin üretimi.
Transpozonun hareketi zorunlu olarak hücreler arası mıdır?
Hayır; slaytta hücre içindeki kromozom ve plazmid konumları arasında hareketi anlatılır.
Plazmid profillemesi ne için kullanılabilir?
Suşların plazmid örüntülerini karşılaştıran bir genotipleme yöntemi olarak.
5. Transformasyon: çevreden serbest DNA alımı
Kaynak slaytlar: 57–60
5.1 Yatay aktarım üçlüsü içinde transformasyon
Slayt 57 yatay gen aktarımının üç yöntemini transformasyon, konjugasyon ve transdüksiyon olarak sıralar. Genler çoğunlukla aynı türün üyeleri arasında, kimi zaman türler arasında aktarılabilir. Üç yöntemi taşıyıcı üzerinden ayırmak kolaydır: transformasyonda çevredeki serbest DNA, konjugasyonda canlı verici hücreyle doğrudan temas, transdüksiyonda bakteriyofaj aracılığı vardır. Slayt 58'de transformasyon (transformation), bakterinin çıplak/serbest DNA molekülünü almasıdır. 1928 tarihli Griffith deneyi, bakteride genetik değiş tokuşun ilk keşfedilen örneği olarak verilir. Deneyin dersi, ölü vericiden çıkan bir bilginin canlı alıcının kalıcı özelliğini değiştirebilmesidir; mekanizma için mutlaka iki canlı hücrenin fiziksel teması gerekmez.
| Yatay yol | DNA'nın kaynağı/taşıyıcısı | Alıcı açısından ayırıcı durum |
|---|---|---|
| Transformasyon | Ortamdaki serbest DNA | Kompetans ve DNA alımı gerekir |
| Konjugasyon | Canlı verici, hücre teması | Eşleşme ve aktarım sistemi gerekir |
| Transdüksiyon | Bakteriyofaj partikülü | Faj aracılı DNA taşınması gerekir |
5.2 Bağlanma, içeri alma ve yeniden birleşme
Slayt 59 mekanizmayı üç evreye ayırır. Önce verici bakteri ölür ve parçalanırken transforming DNA açığa çıkar. Serbest DNA, canlı alıcının yüzeyindeki bağlama proteinlerine tutunur. Slayt yaklaşık “20 gen uzunluğunda” bir parçayı örnek verir; bu sayı her tür ve her olay için sabit molekül büyüklüğü olarak okunmamalıdır. Sonra nükleazlar DNA'yı işler: bir zincir yıkılır, diğer zincir alıcıya geçer. Son olarak gelen DNA ile kromozomun benzer bölgeleri eşleşerek homolog rekombinasyon (homologous recombination) yapabilir. Yalnız DNA'nın yüzeye bağlanması kalıcı transformant oluşturmaz; alım ve DNA'nın korunması/yerleşmesi gerekir.
- Ölü vericiden serbest DNA çevreye çıkar.
- Kompetan alıcı DNA'yı yüzeyinde bağlar.
- DNA hücre zarfından geçerken işlenir; bir zincir sitoplazmaya ulaşır.
- Uygun homoloji varsa alıcı kromozomuyla rekombinasyon olur.
- Yeni genetik dizi korunur ve sonraki bölünmelere aktarılabilir.
Slayt 60 kompetans (competence) için, bazı bakterilerin büyüme döngüsünün belirli zamanlarında DNA alımına uygun proteinler ürettiğini söyler ve log fazını örnek verir. Kompetans, her bakteride her an bulunan genel geçirgenlik değildir; düzenlenmiş fizyolojik durumdur. Aynı slayt Gram pozitif bakterilerin tek zincirli, Gram negatiflerin çift zincirli DNA aldığını söyler. Burada “alım” sözcüğünün hangi zarı geçişi anlattığı önemlidir: Gram negatifte çift zincirli DNA dış zarı geçip periplazmaya ulaşabilir; sitoplazmik zarı geçen dönüşüm zinciri ise çoğunlukla tektir. Bu nüans kaynak notlarında doğrulanmıştır. Slayt 59'daki “bir zincir yıkılır, biri alıcıya girer” çizgisi de sitoplazmaya geçişin tek zincirli olduğunu anlatır.
Ortamda serbest DNA bulunması tek başına transformasyon kanıtı değildir. Alıcı hücrenin DNA bağlama ve alma kapasitesi ile gelen dizinin korunması ayrı aşamalardır.
Slayttaki Gram negatif “çift zincirli DNA alır” ifadesi dış zar/periplazma düzeyini anlatır. İç zardan sitoplazmaya geçiş için tek zincirli DNA ayrımını koruyun.
Çevredeki serbest DNA'dan yeni genetik bilgi alınması, bakterinin özelliklerini değiştirebilir. Bunun gerçekleşmesi, DNA'nın yalnız ortamda bulunmasına değil alıcının kompetansına ve gelen dizinin sürdürülmesine bağlıdır.
Transformasyonda DNA'nın doğrudan kaynağı nedir?
Çevredeki çıplak veya serbest DNA molekülleri.
Griffith deneyi hangi yatay aktarım yolunun tarihsel örneğidir?
Transformasyon.
Kompetans neyi belirtir?
Bakterinin dış DNA'yı bağlayıp alabilen fizyolojik durumunu.
Gelen DNA kromozoma hangi benzerlik üzerinden katılabilir?
Homolog bölgeler arasında rekombinasyon yoluyla.
Gram negatif bakteride çift zincirli DNA nereye girebilir, sitoplazmaya hangi biçim geçer?
Çift zincirli DNA periplazmaya girebilir; sitoplazmaya genellikle tek zincir geçer.
6. Konjugasyon: temasla plazmid aktarımı
Kaynak slaytlar: 61–64
6.1 Verici, alıcı ve F faktörü
Slayt 61 konjugasyon (conjugation) için DNA'nın canlı vericiden alıcıya hücre hücre temasıyla geçmesini temel özellik olarak verir. Slaytta Joshua Lederberg ve 1946 tarihi anılır. Gösterilen mekanizma plazmid tarafından kodlanır; Gram negatif bakterilerde plazmid aktarımının aynı veya yakın tür suşları arasında gözlendiği vurgulanır. Bu, konjugasyon için her zaman aynı tür şarttır şeklinde evrensel bir kural olarak okunmamalıdır; slayt tipik örneğin sınırını çizer. Transformasyondaki serbest DNA ile farkı, vericinin canlı ve aktarıma doğrudan katılıyor olmasıdır.
Slayt 62'de F faktörü/F plazmidi (fertility factor), kendi aktarımını sağlayan genleri taşıyan dairesel DNA olarak tanıtılır. Kendi başına çoğalabilir; replikasyon düzenleyici genler, seks pilusu (sex pilus) ve konjugasyon enzimlerinin üretimiyle ilişkili genler taşır. F plazmidi bulunan hücre F⁺ verici, bulunmayan hücre F⁻ alıcıdır. Slayttaki “erkek/dişi” benzetmesi hücrelerin üreme cinsiyetini değil, aktarım yönünü öğretmek için kullanılır. F⁺ hücrenin amacı bütün kromozomunu mutlaka aktarmak değildir; bu slayttaki standart senaryo F plazmidinin aktarımıdır.
| Hücre | Başlangıçtaki F durumu | Bu örnekte görevi | Standart aktarım sonu |
|---|---|---|---|
| F⁺ | F plazmidi taşır | Verici | F plazmidini korur |
| F⁻ | F plazmidi taşımaz | Alıcı | F plazmidini edinerek F⁺ olur |
6.2 Pilus ve tek zincir aktarımı
Slayt 63'te pilus, verici ile alıcının özgül eşleşmesini sağlar: alıcıdaki reseptöre temas eder, pilus alt birimlerinin sökülmesiyle kısalır ve hücreleri yaklaştırır. Gram negatif örnekte seks pilusu eşleşmenin görünür yapısıdır. Gram pozitif bakteriler için slayt, eşleşmede adezinlerin (adhesins) rolünü ve seks pilusunun bulunmadığını belirtir. Buradan “Gram pozitiflerde gen aktarımı yoktur” sonucu çıkmaz; yalnız verilen yapışma biçimi farklıdır. Pilus, DNA'nın kendisi değildir; eşleşmeyi sağlayan protein yapıdır.
Slayt 64 mekanizmayı izler: pilus kısalıp eşleşen çift (mating pair) oluşur; temas kararlılaşır; plazmid DNA'sının bir zincirinde kesi (nick) açılır. Bir zincir alıcıya aktarılırken vericide onun yerine DNA sentezlenir. Alıcıda da gelen zincirin tamamlayıcısı sentezlenir. Başlangıçtaki tek plazmidin iki hücrede birer çift zincirli kopya hâline gelmesi, iki hücrenin de süreç sonunda F⁺ görünmesini açıklar. Verici DNA'sını tümüyle kaybetmez. Görseldeki ardışık hücre çizimleri, “pilus üzerinden çift zincirli daire olduğu gibi geçer” yanılgısını düzeltir: aktarım çizimde tek zincir düzeyindedir.
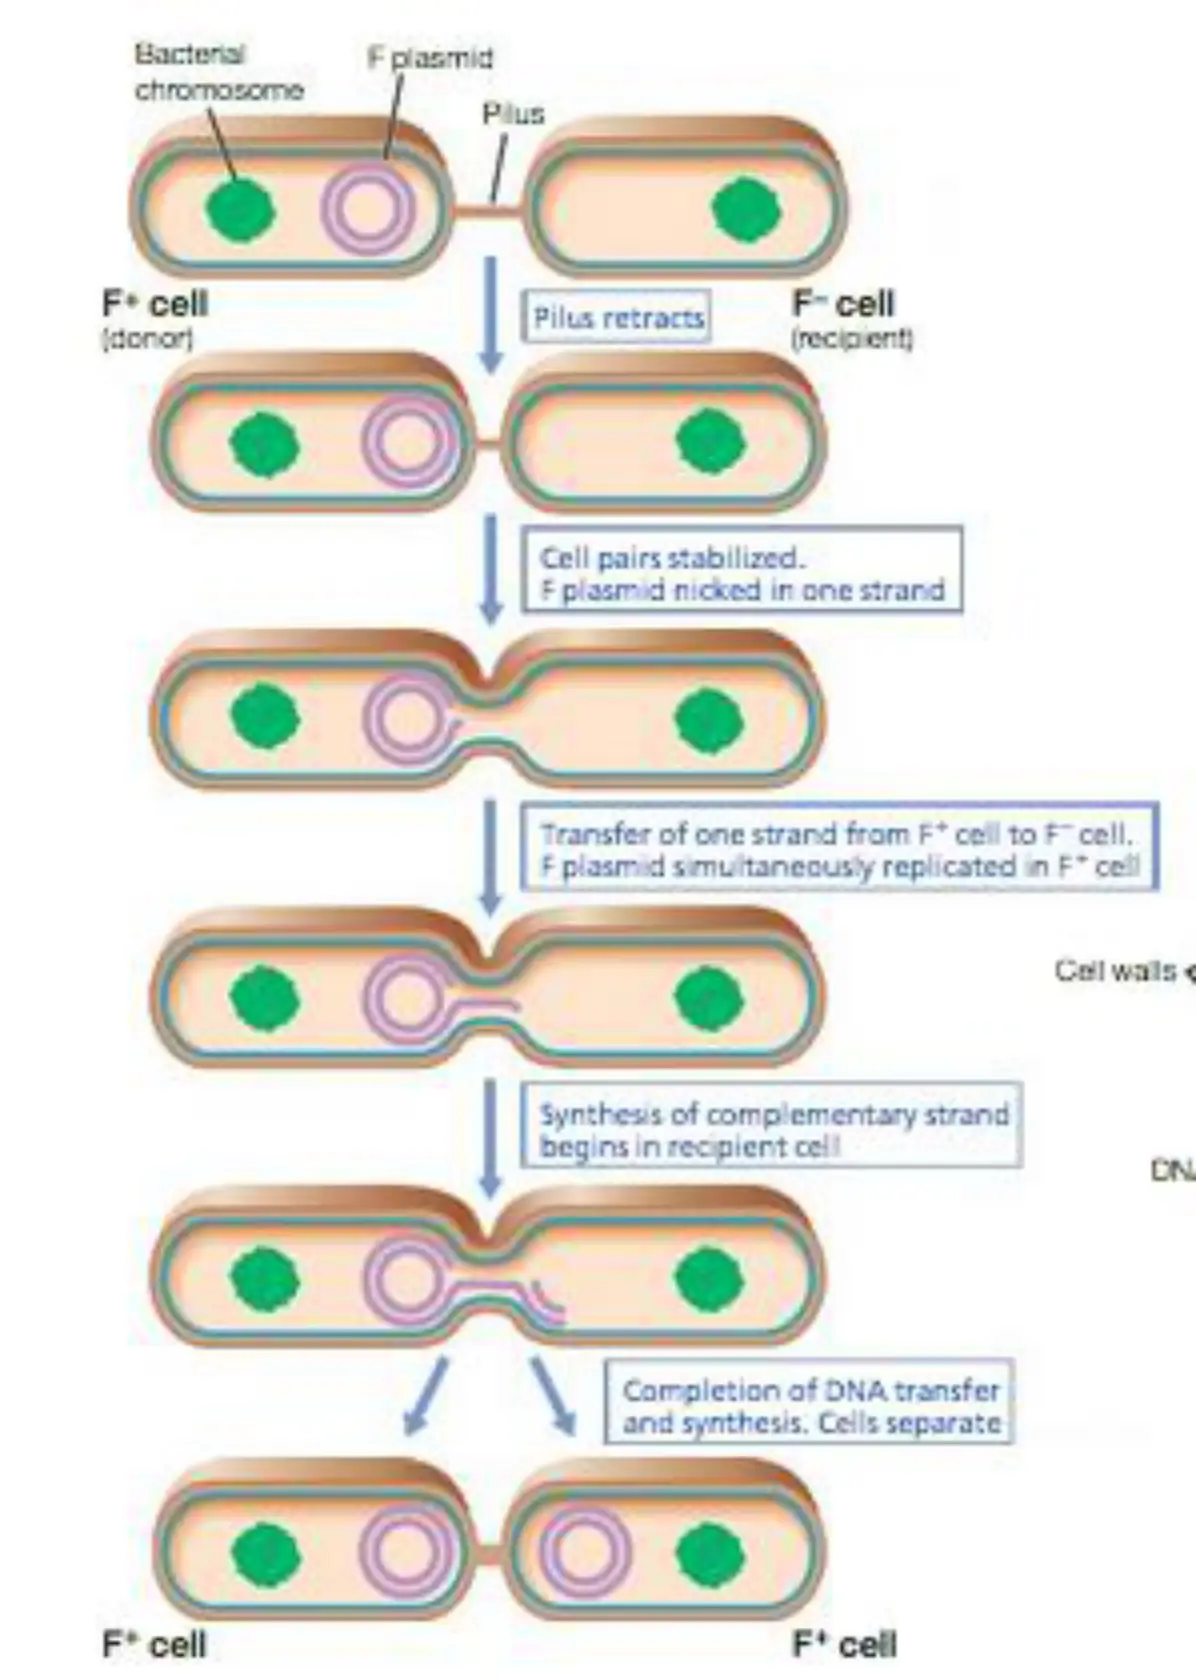
- F⁺ verici pilusla F⁻ alıcıyı tanır ve hücreleri yaklaştırır.
- Kararlı temas kurulur, F plazmidinin bir zincirine nick açılır.
- Tek zincir alıcıya geçerken vericide eksilen zincir sentezlenir.
- Alıcıda gelen zincirin tamamlayıcısı sentezlenir.
- Hücreler ayrılır; ikisi de F plazmidi taşır.
İşaretler aktarım öncesindeki plazmid varlığını gösterir. Standart slayt mekanizmasının sonunda alıcı F⁺ olur; verici F⁻ hâline dönüşmez.
Pilus alıcıyı bulup hücreleri yaklaştırır. DNA geçişinin temel koşulu kararlı hücre teması ve plazmidin işlenmesidir; şekli yalnız “DNA pilusun içinden fırlatılır” diye okumayın.
F plazmidi, konjugasyonun nasıl işlediğini öğreten modeldir. Aktarılabilir direnç genleri taşıyan R plazmidleri de uygun aktarım özellikleriyle popülasyonda direnç yayılımına katkıda bulunabilir.
Konjugasyonu transformasyondan ayıran doğrudan koşul nedir?
Canlı vericiyle alıcı arasında hücre hücre teması.
F⁺ ve F⁻ hücreler ne taşır?
F⁺ F plazmidini taşır; F⁻ taşımaz.
Seks pilusunun ilk görevi nedir?
Verici ile alıcıyı eşleştirip yaklaştırmak.
Standart F aktarımında alıcıya kaç DNA zinciri geçer?
Plazmidin bir zinciri geçer; tamamlayıcısı alıcıda sentezlenir.
Aktarım sonunda verici ve alıcının F durumu nedir?
İkisi de F plazmidi taşıyan F⁺ hücre olur.
7. Transdüksiyon, faj döngüleri ve rekombinasyon
Kaynak slaytlar: 65–69
7.1 Fajın DNA taşıma rolü
Slayt 65'te transdüksiyon (transduction) bakteriyofajın bir bakteriden diğerine bakteriyel DNA taşımasıdır. Faj verici hücrede çoğalırken bazen bakteri kromozomunun veya plazmidinin bir parçası yanlışlıkla kapside paketlenir. Böyle bir partikül başka bakteriyi enfekte edince bakteri DNA'sı da alıcıya taşınır. Bu yol, transformasyondaki serbest DNA'dan ve konjugasyondaki canlı verici temasından ayrılır: taşıyıcı faj partikülüdür. Fajın bütün yaşam döngüsünü bilmek, taşınan DNA'nın neden kimi zaman rastgele bir parça, kimi zaman belirli bir komşu gen olduğunu anlamayı sağlar.
Slayt 65 iki tipi ayırır. Genelleştirilmiş transdüksiyon (generalized transduction) herhangi bir bakteri genini taşıyabilir. Özelleşmiş/sınırlı transdüksiyon (specialized transduction) yalnız profajın kromozomdaki yerleşim noktasına yakın genleri taşıyabilir. Bu fark, “faj hangi DNA'yı yanlış paketledi?” sorusuyla çözülür. Slayt 66'da litik (lytic) döngü enfekte hücrenin ölümü ve olgun fajların salınmasıdır. Lizojenik (lysogenic) döngüde faj DNA'sı kromozoma profaj (prophage) olarak katılır. Profajın varlığı, hücrenin o anda lizisle parçalanması anlamına gelmez; uygun durumda daha sonra aktif döngüye geçiş olabilir.
| Kavram | Genelleştirilmiş transdüksiyon | Özelleşmiş transdüksiyon |
|---|---|---|
| Gen kaynağı | Donör kromozomunun rastgele bir parçası paketlenebilir | Profaja komşu konak genleri taşınır |
| Gen kapsamı | İlke olarak herhangi bir bakteri geni | Entegrasyon bölgesine yakın genlerle sınırlı |
| Slayttaki görsel | Litik fajla yanlış paketleme | Lizojenik profajın hatalı ayrılması |
7.2 Litik fajla genelleştirilmiş transdüksiyon
Slayt 67'de litik faj verici bakteriye bağlanır ve genomunu enjekte eder. Faj DNA'sı bakterinin üretim düzenini kendi bileşenleri ve enzimleri için kullanır; bu sırada konak DNA'sı parçalanabilir. Yeni kapsidler kurulurken bir kapside yanlışlıkla vericinin kromozom parçası girer. Verici hücre lizisle açılır ve bu transdüksiyon yapan partikül salınır. Partikül başka bakteriye bağlanınca taşıdığı verici DNA'sını alıcıya aktarır. Slayt 67 görselinin son basamağında gelen DNA, alıcı kromozomuna rekombinasyonla katılır. Yanlış paketleme rastgele parçalarla ilgili olduğundan genelleştirilmiş tipte aktarılabilir gen yelpazesi geniştir; “her faj her geni aynı anda taşır” anlamına gelmez.
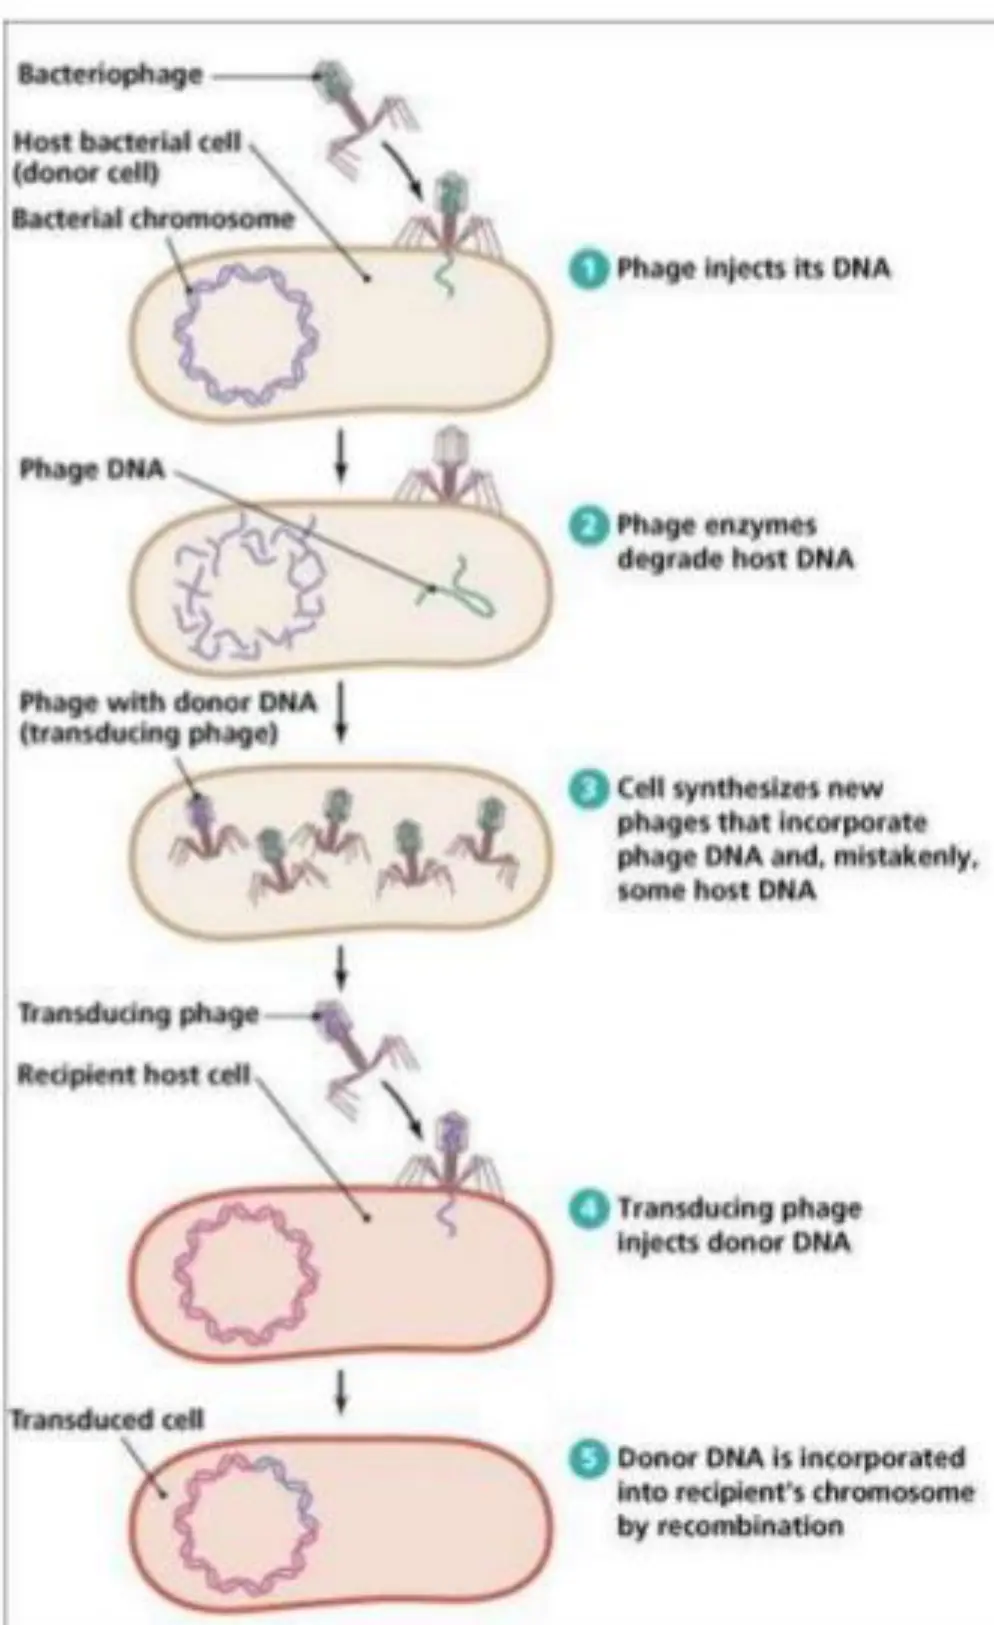
- Faj verici bakteriyi enfekte eder ve faj üretimini başlatır.
- Konak DNA'sı parçalanırken yeni kapsidler kurulur.
- Bir kapsid yanlışlıkla donör bakteri DNA'sı paketler.
- Hücre lizisiyle çıkan partikül alıcı bakteriye DNA'yı taşır.
- Uygun koşulda donör DNA alıcı kromozomuyla rekombine olur.
7.3 Lizojenik fajla özelleşmiş transdüksiyon
Slayt 68'de faj DNA'sı konak kromozomuna profaj olarak entegre olur. Görsel, profajın yanındaki galaktoz genlerini örnek gösterir. İndüksiyondan sonra olağan ayrılmada faj DNA'sı kromozomdan kendi sınırlarıyla çıkar. Nadir hatalı ayrılmada ise komşu konak DNA parçası faj DNA'sıyla birlikte alınır. Kopyalanıp kapsidlere paketlenen bu hibrit DNA, yeni alıcıya taşınabilir. Görselde “defective phage” denmesinin nedeni, bakteriyel DNA'nın faj genlerinin bir bölümünün yerini alabilmesidir. Slayt metni lizojenik döngüden “replikasyon tamamlanır, hücre lizisle açılır” diye doğrudan geçer; arada indüksiyon ve hatalı profaj ayrılması vardır. Bu ek basamak görselde açıktır ve mekanizmanın özelleşmiş olmasını açıklar.
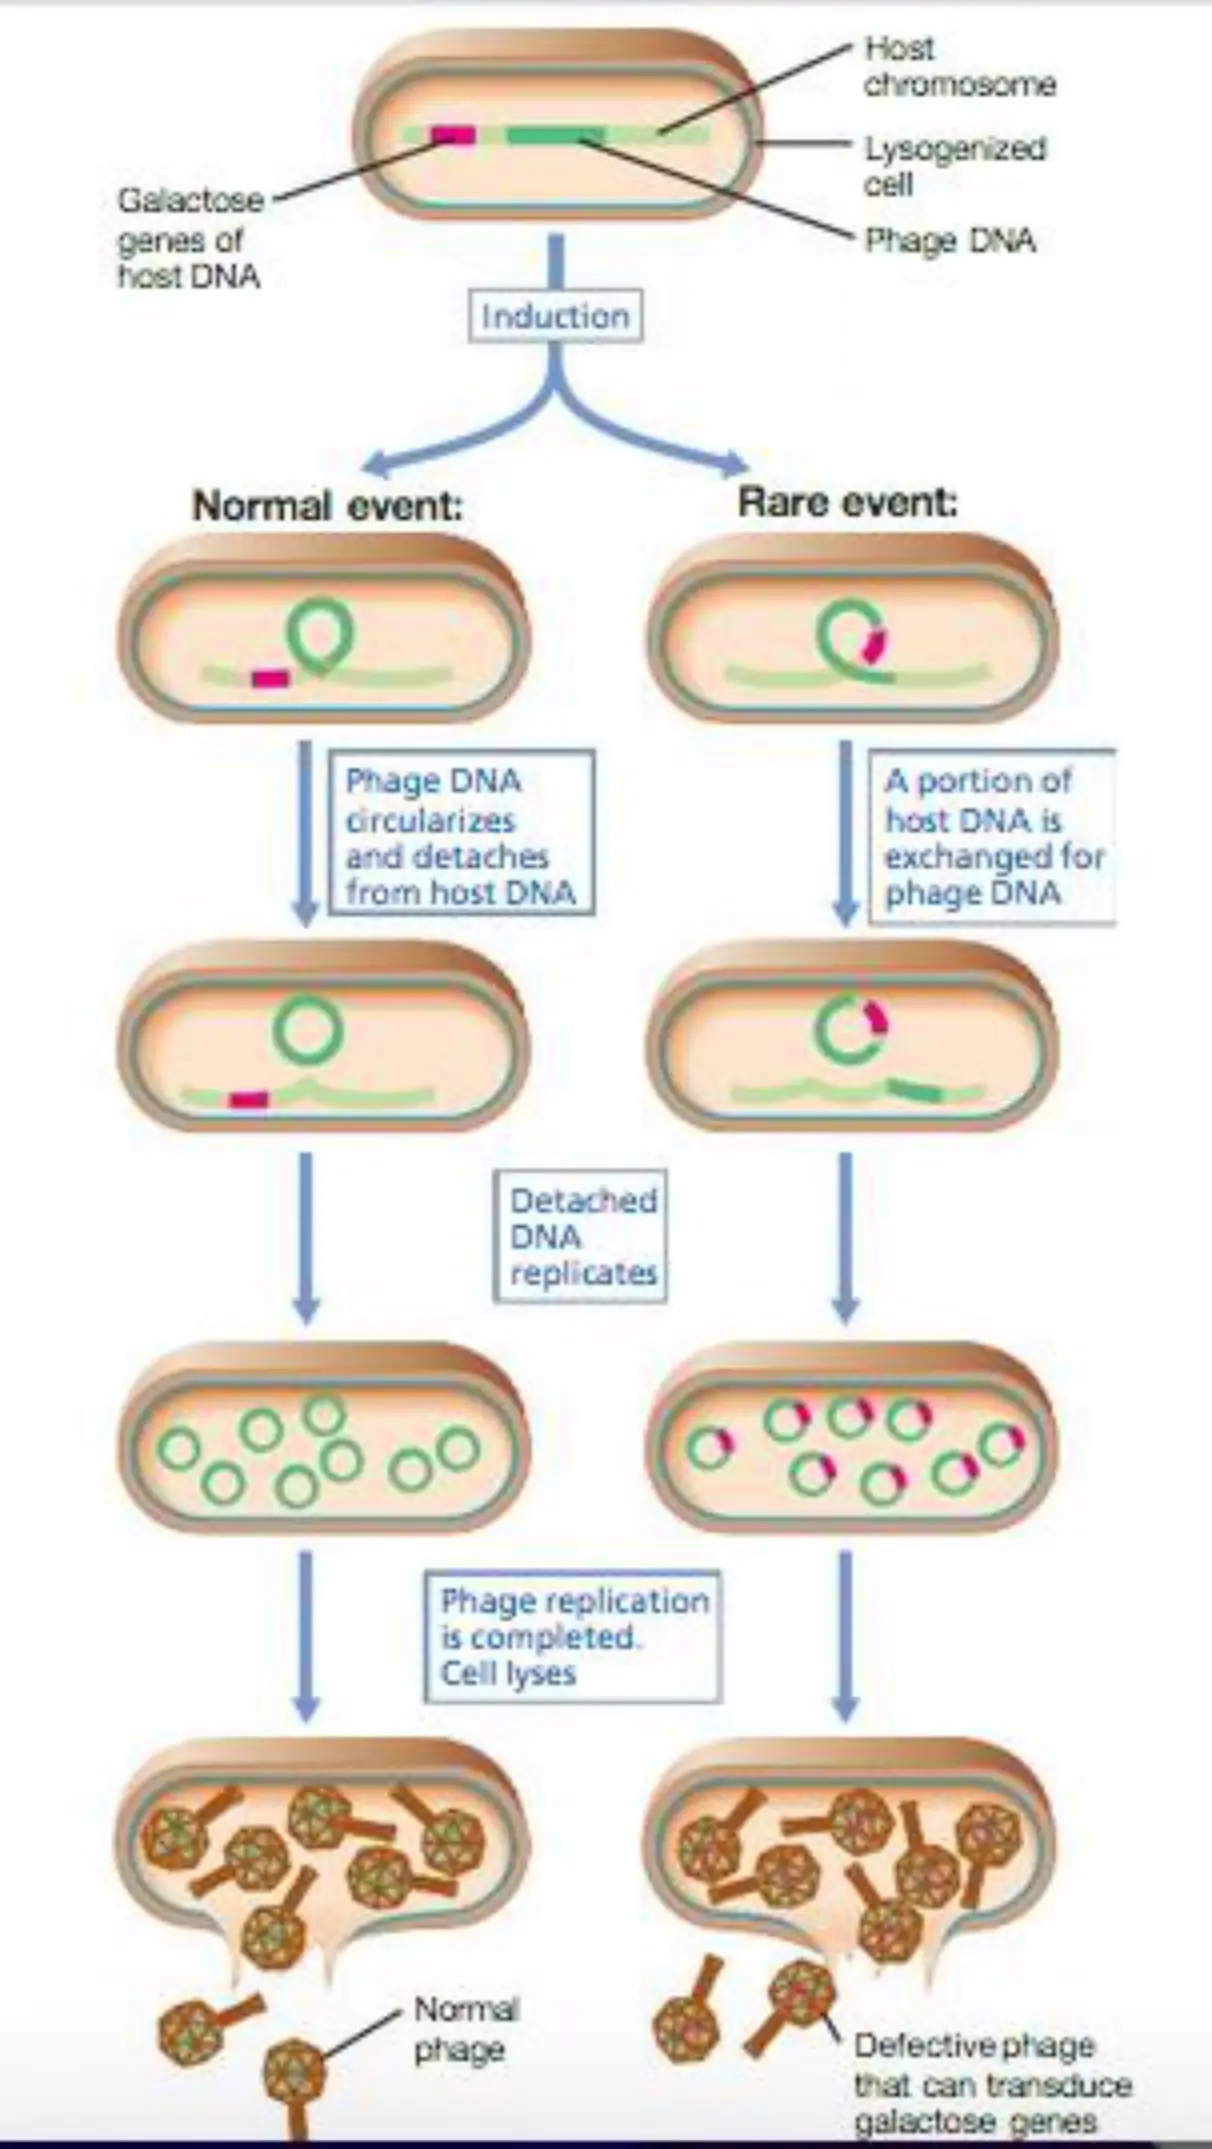
Litik döngüde faj üretimi ve hücre lizisi doğrudandır. Lizojenide faj genomu önce profaj olarak kromozomda kalır; özelleşmiş transdüksiyon için indüksiyon ve komşu DNA'yı alan hatalı ayrılma gerekir.
Slayt 69, DNA alıcıya geçtikten sonra kalıcı olmasının bir yolunu rekombinasyon ile açıklar. Homolog rekombinasyonda geniş benzerlik taşıyan DNA bölgeleri eşleşir, kesilip yeniden birleşerek parça değiştirir. Homolog olmayan rekombinasyonda (nonhomologous recombination) çok az veya hiç dizi benzerliği yeterli olabilir. Gelen DNA'nın hücreye taşınmasıyla kromozoma katılması farklı olaylardır: aktarım yolu ne olursa olsun, kromozomal özellik için uygun yerleşme basamağı gerekebilir. Buna karşılık kendi başına çoğalabilen bir plazmidin alıcıda sürmesi, her durumda kromozomal entegrasyon gerektirmez. Bu ayrım slayt 51'deki “aktarım” ile slayt 69'daki “yeniden birleşme” terimlerini bağlar.
Genelleştirilmiş transdüksiyonda rastgele paketleme nedeniyle ilke olarak kromozomun değişik bölgelerinden genler taşınabilir. Tek bir transdüksiyon olayı bütün kromozomu taşımaz.
Bir bakteriyofaj dirençle ilişkili DNA'yı alıcıya taşıyabilir. Yeni özelliğin sürmesi için alıcı DNA'sında korunması ve ifade edilebilmesi gerekir; bu yüzden aktarımı ve fenotipi ayrı değerlendirin.
Transdüksiyonda hücreler arası DNA taşıyıcısı nedir?
Bakteriyofaj partikülü.
Genelleştirilmiş transdüksiyonda neden farklı genler aktarılabilir?
Donör DNA'sının farklı parçaları yanlışlıkla kapside paketlenebilir.
Özelleşmiş transdüksiyonda neden yalnız yakın genler taşınır?
Profaj hatalı ayrılırken entegrasyon bölgesine komşu konak DNA'sını alır.
Profaj nedir?
Lizojenik faj DNA'sının konak kromozomuna katılmış biçimi.
Homolog rekombinasyonun temel önkoşulu nedir?
Eşleşebilen geniş benzer DNA bölgeleri.
8. Antibiyotik direncinin genetik mekanizmaları
Kaynak slaytlar: 70–72
8.1 İntrinsik ve kazanılmış direnç
Slayt 70 bakteri antibiyotik direncini intrinsik (intrinsic) ve kazanılmış (acquired) olarak ayırır. İntrinsik direnç, bakterinin antibiyotik kullanılmadan önce de o maddeye dirençli olmasıdır; türün doğal yapısal veya fizyolojik özellikleriyle ilişkili olabilir. Kazanılmış dirençte önceden duyarlı olan bakteri artık dirençlidir. Genetik düzeyde bunun kaynağı yeni mutasyon veya direnç geninin yatay aktarımı olabilir. Slayt iki klinik sonucu vurgular: tedavi başarısızlığı ve direncin başka bakterilere yayılma olasılığı. “Direnç” tek mekanizmanın adı değil, farklı moleküler süreçlerin benzer ilaç duyarlılığı fenotipine çıkabilen ortak sonucudur.
| Direnç türü | Başlangıç durumu | Olası genetik açıklama | Çalışma ipucu |
|---|---|---|---|
| İntrinsik | Antibiyotik öncesinde de dirençli | Türün doğal özellikleri | “Başından beri” ifadesi |
| Kazanılmış | Önceden duyarlı | Mutasyon veya gen edinimi | “Duyarlı iken dirençli oldu” ifadesi |
8.2 İlacın etkisini bozan beş yol
Slayt 71 direnç için beş mekanizma verir. Enzimatik inaktivasyon, bakterinin ürettiği enzimin antibiyotiği etkisizleştirmesidir; beta-laktamaz örneği slayt 72'de gelir. Hedef değişikliği, antibiyotiğin bağlandığı proteinin yapısının değişmesiyle bağlanmanın zayıflaması veya kaybolmasıdır. Azalmış geçirgenlik, zarın değişmesiyle ilacın hücreye daha az girmesidir. Aktif efluks (active efflux), pompanın hücre içindeki ilacı dışarı atmasıdır. Alternatif metabolik yol, ilacın engellediği basamağın başka yoldan aşılmasıdır. İlk iki mekanizma ilacın kendisini veya bağlanacağı hedefi değiştirirken, geçirgenlik ve efluks hücre içi ilaç miktarını azaltır; alternatif yol ise hedeflenen işlevin çevresinden dolaşır.
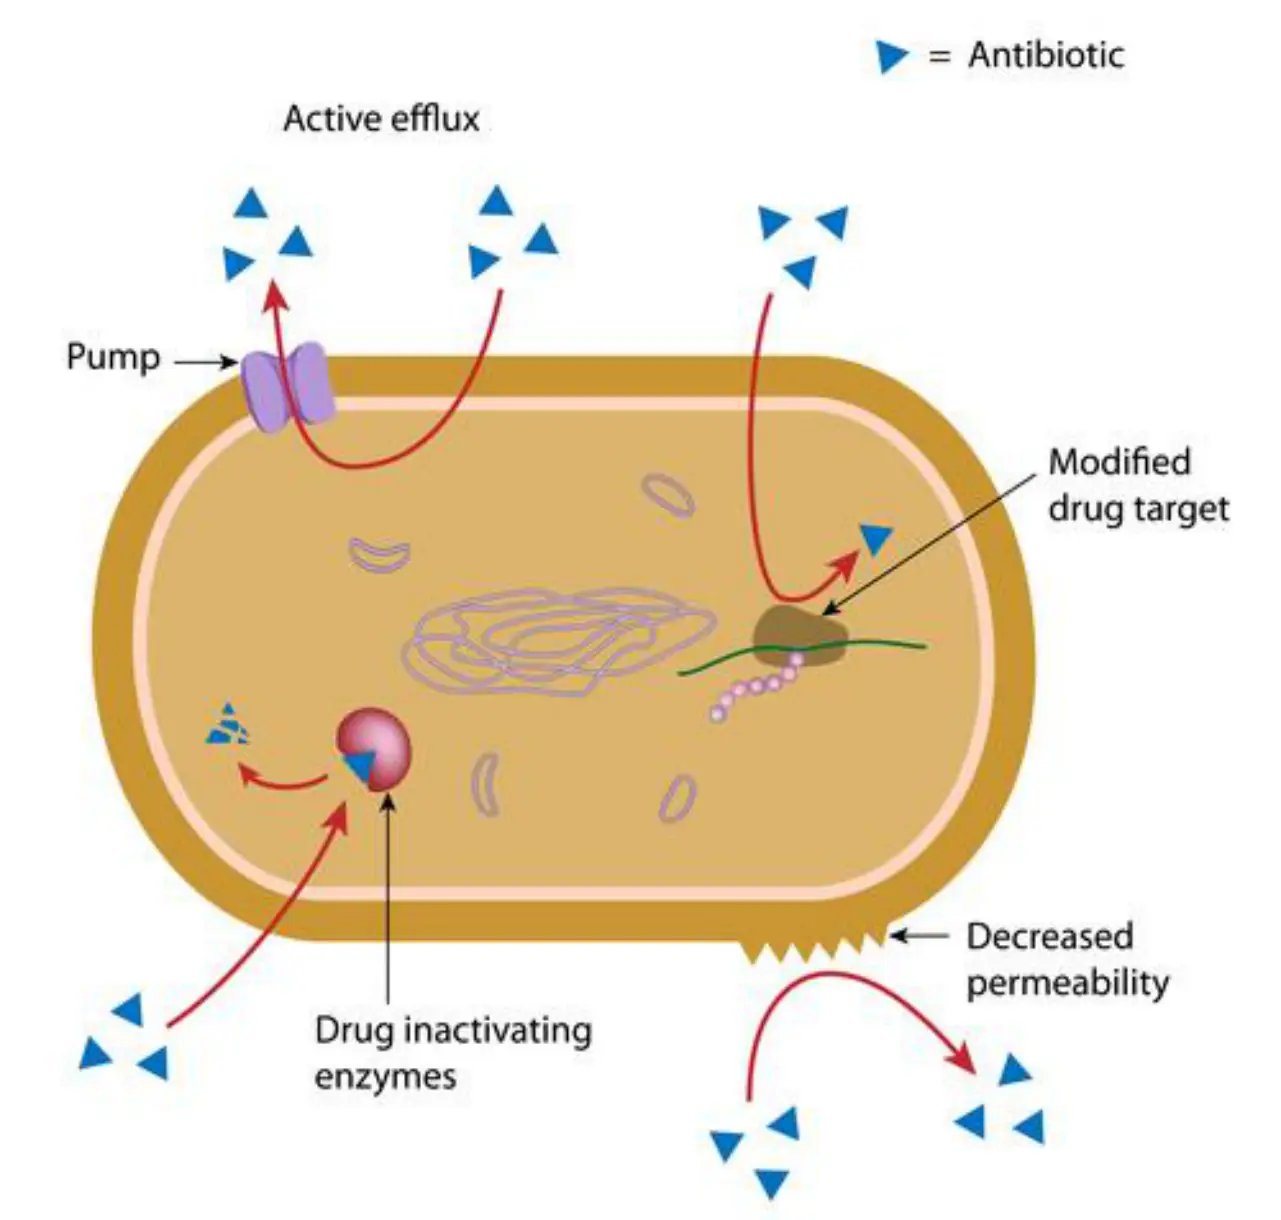
| Mekanizma | Hücrede ne değişir? | Beklenen sonuç |
|---|---|---|
| Enzimatik inaktivasyon | Antibiyotik parçalanır veya kimyasal değişir | Etkin ilaç azalır |
| Hedef değişimi | İlacın bağlandığı yapı değişir | Bağlanma azalır |
| Azalmış geçirgenlik | İlacın giriş yolu kısıtlanır | İçeri giren miktar azalır |
| Aktif efluks | İlaç dışarı pompalanır | Hücre içi miktar azalır |
| Alternatif metabolik yol | Engellenen işlem başka yoldan sürer | İlaç hedefi aşılır |
Azalmış geçirgenlik, ilacın girişini sınırlar; efluks, içeri girmiş ilacın çıkışını artırır. İkisi de hücre içi düzeyi azaltabilir ama aynı mekanizma değildir.
8.3 Aktarılabilir direnç ve klinik yorum
Slayt 72'de aktarılabilir ilaç direnci, ilişkili bakteriler veya farklı taksonomik gruplar arasında konjugasyon ve transdüksiyon ile yayılabilir olarak sunulur. Gram negatif bakterilerde penisilin direncine yol açan bazı beta-laktamazların plazmidce kodlanması, konjugasyonla taşınabilecek bir örnektir. Stafilokoklarda penisilin direnciyle ilişkili beta-laktamaz bilgisinin transdüksiyonla aktarılması ikinci örnektir. Bu iki örnek, aynı fenotipin farklı genetik taşıyıcı ve yollarla yayılabileceğini gösterir. Bir bakterinin dirençli olduğu görüldüğünde mekanizmayı yalnız fenotipten kesin çıkaramayız; enzim, hedef, zar, pompa ve genetik taşıyıcı için ek kanıt gerekir.
- Mutasyon ya da yatay aktarım dirençle ilişkili genetik özelliği oluşturur veya getirir.
- Gen ifade edilir; enzim, değişmiş hedef, geçirgenlik, efluks veya alternatif yol ortaya çıkar.
- Antibiyotik hücrede yeterince etki gösteremez.
- Dirençli bakteri uygun koşulda çoğalır; tedavi yanıtı zayıflayabilir.
- Aktarılabilir öğeler başka bakterilere geçerse direnç daha geniş bir gruba yayılabilir.
Antibiyotik kullanımı düşünülen bir enfeksiyonda “hangi bakteri?” kadar “ilaç bu bakteride hangi basamağı hedefler ve direnç bunu nasıl engeller?” sorusu da değerlidir. Bu ders klinik karar algoritması vermez; fakat direnç fenotipinin biyolojik gerekçesini kurar.
Kazanılmış direnç bir kromozomal mutasyondan doğabileceği gibi plazmid veya fajla gelen genetik bilgiden de doğabilir. “Kazanılmış” kelimesi tek başına “mutlaka plazmid” demek değildir.
İntrinsik direnç ile kazanılmış direnç hangi başlangıç durumuyla ayrılır?
İntrinsik direnç baştan vardır; kazanılmış direnç önceden duyarlı hücrede sonradan ortaya çıkar.
Beta-laktamaz slaytta hangi direnç yoluna örnektir?
Antibiyotiğin enzimatik inaktivasyonuna.
Efluks ile azalmış geçirgenlik arasındaki yön farkı nedir?
Efluks ilacı dışarı çıkarır; azalmış geçirgenlik ilacın içeri girişini sınırlar.
Alternatif metabolik yol direnci nasıl sağlar?
İlacın bloke ettiği işlevi başka bir yoldan sürdürerek etkisini aşar.
Slayt 72 aktarılabilir penisilin direnci için hangi iki yolu örnekler?
Gram negatiflerde plazmid ilişkili aktarım/konjugasyon ve stafilokoklarda transdüksiyon.
Hızlı tekrar
| Tetik sözcük veya şekil | Doğru eşleştirme | Kontrol sorusu |
|---|---|---|
| Deoksiriboz, T | DNA | RNA'da hangi şeker ve baz değişir? |
| 5′ fosfat, 3′-OH | Zincir polaritesi | Polimeraz nereye ekler? |
| Negatif süpersarmal | Göreli az sarılma | Giraz hangi topolojiyle ilgilidir? |
| Ori ve iki çatal | Çift yönlü replikasyon | Her ürün hangi eski zinciri içerir? |
| Helikaz → primaz → Pol III → Pol I → ligaz | Açma → başlatma → uzatma → primer giderme → birleştirme | Geciken zincir niçin parçalara ayrılır? |
| Promotor → RNA polimeraz → terminatör | Transkripsiyon | Hangi DNA zinciri kalıptır? |
| AUG / UAA, UAG, UGA | Başlangıç / dur kodonları | Kodon hangi RNA'dadır? |
| 30S + 50S → 70S | Bakteri ribozomu | S değerleri niçin aritmetik toplanmaz? |
| Substitüsyon / indel | Baz değiştirme / ekleme-çıkarma | Sonuç türü ayrıca nedir? |
| Sessiz / missense / nonsense | Aynı amino asit / değişen amino asit / erken dur | Protein dizisi nasıl etkilenir? |
| Serbest DNA / canlı verici / faj | Transformasyon / konjugasyon / transdüksiyon | Taşıyıcı nedir? |
| F / R / Col | Fertilite / direnç / bakteriyosin | Genler hangi avantajı sağlar? |
| Litik / lizojenik | Lizisle faj çıkışı / profaj oluşumu | Hangi olay özelleşmiş aktarımı açıklar? |
| Giriş azalır / çıkış artar | Azalmış geçirgenlik / efluks | Hücre içi ilaç düzeyi nasıl düşer? |
20 özgün çalışma sorusu
Bu sorular çıkmış sınav sorusu değildir; slaytlardaki bilgiyi uygulayarak çalışmak için özgün olarak hazırlanmıştır.
Bir bakteri direnç genini taşıyor, ancak belirli ortamda gen ürünü ölçülemiyor. Bu durum en doğrudan hangi ayrımı gösterir? A) Genotip–fenotip · B) Pürin–pirimidin · C) Litik–lizojenik · D) Endonükleaz–ekzonükleaz · E) Konjugasyon–transdüksiyon
Bir DNA zincirinde 3′-OH ucu kapatılırsa yeni DNA uzamasını başlatan polimeraz açısından en doğrudan sorun nedir? A) Kodon dur sinyaline dönüşür · B) Bazlar pirimidine dönüşür · C) Eklenecek nükleotit için uygun uç kalmaz · D) Profaj ayrılır · E) Plazmid kopya sayısı sıfırlanır
Dairesel bakteri kromozomunun hücreye sığmasını açıklayan slayt 10 kavramı hangisidir? A) Antikodon · B) Süpersarmal domainler · C) Urasil eşleşmesi · D) Okazaki parçası · E) Terminatör
Ori'den ayrılan çatallarda her yeni çift sarmalın bir eski ve bir yeni zincir taşımasına ne denir? A) Sessiz mutasyon · B) Transdüksiyon · C) Konstitutif ifade · D) Yarı korunumlu replikasyon · E) İnversiyon
Geciken zincirin Okazaki parçaları hâlinde yapılmasının temel nedeni hangisidir? A) Ligazın yalnız RNA bağlaması · B) DNA kalıplarının ters yönlü, sentezin yalnız 5′→3′ olması · C) Antikodonun üç bazlı olması · D) Bütün bakterilerin doğrusal kromozom taşıması · E) Ribozomların 70S olması
Yeni zincirde RNA primeri uzaklaştırılıp boşluk DNA ile doldurulmuştur; kalan kesiği hangi enzim kapatır? A) Helikaz · B) Primaz · C) DNA ligaz · D) RNA polimeraz · E) Endonükleaz
Kalıp DNA 3′-ATGCAT-5′ ise oluşan mRNA dizisi hangisidir? A) 5′-ATGCAT-3′ · B) 5′-AUGCAU-3′ · C) 5′-TACGTA-3′ · D) 5′-UACGUA-3′ · E) 5′-AAGCUA-3′
Bir tRNA üzerindeki üçlü baz dizisi hangi adı alır? A) Promotor · B) Kodon · C) ORF · D) Antikodon · E) Profaj
Bakteri ribozomu için doğru eşleştirme hangisidir? A) 30S + 50S → 70S · B) 30S + 50S → 80S · C) 40S + 60S → 70S · D) 50S + 50S → 100S · E) Tek bir 70S protein zinciri
Bir genin DNA dizisi değişmeden protein miktarı çevresel uyarıyla artıyor. En uygun açıklama hangisidir? A) Nonsense mutasyon · B) İndüksiyon · C) İnversiyon · D) Transversion · E) Frameshift
A bazının G'ye dönüşmesi ve amino asidin aynı kalması nasıl birlikte adlandırılır? A) Transversion ve nonsense · B) Transition ve sessiz mutasyon · C) Transition ve frameshift · D) İnversiyon ve missense · E) Delesyon ve nonsense
Kodlanan bölgeye tek bir nükleotit eklenmesinin üç baz eklenmesine göre daha yaygın çerçeve kaydırmasının nedeni nedir? A) Tek baz kodon sınırlarını değiştirir · B) Üç baz DNA'da bulunamaz · C) Primeri siler · D) Ribozomu 80S yapar · E) F plazmidini çıkarır
Bir mutasyon erken UAG oluşturuyor. Protein sonucuna göre adı nedir? A) Sessiz · B) Konservatif missense · C) Nonsense · D) Transdüksiyon · E) Kompetans
Referans mutant fenotipini farklı DNA konumundaki ikinci değişiklik geri çeviriyor. İkinci değişiklik nedir? A) Suppressor mutation · B) İntrinsik direnç · C) Genelleştirilmiş transdüksiyon · D) Promotor · E) Bakteriyosin
Bağımsız çoğalan, aktarılabilir ilaç direnci genleri taşıyan DNA öğesi en uygun hangi adla anılır? A) Col faktörü · B) R faktörü · C) Ribozom · D) Endonükleaz · E) Profaj
Ölü donörden çevreye çıkan DNA'yı kompetan canlı bakteri alıyor. Mekanizma hangisidir? A) Konjugasyon · B) Özelleşmiş transdüksiyon · C) Transformasyon · D) İnversiyon · E) Translasyon
F⁺ verici ile F⁻ alıcı standart konjugasyonu tamamlıyor. Son durumda hangisi beklenir? A) İki F⁻ hücre · B) Yalnız alıcı F⁻ kalır · C) Verici ölür · D) İki F⁺ hücre · E) İki profaj
Bir faj, kromozomdaki entegrasyon yerine yakın galaktoz genini hatalı ayrılmayla taşıyor. Mekanizma hangisidir? A) Transformasyon · B) Genelleştirilmiş transdüksiyon · C) Özelleşmiş transdüksiyon · D) Konstitutif ifade · E) Efluks
Antibiyotik hücreye girebiliyor fakat pompa aracılığıyla hızla dışarı çıkarılıyor. Direnç mekanizması nedir? A) Azalmış geçirgenlik · B) Hedef değişimi · C) Alternatif metabolik yol · D) Aktif efluks · E) Timin dimeri
Önceden duyarlı bir bakteride plazmid kaynaklı beta-laktamaz ortaya çıktı. En uygun birleşik yorum hangisidir? A) İntrinsik direnç ve hedef değişimi · B) Kazanılmış direnç ve enzimatik inaktivasyon · C) İntrinsik direnç ve efluks · D) Sessiz mutasyon ve azalmış geçirgenlik · E) Lizojenik döngü ve ribozom inaktivasyonu
Gerekçeli cevap anahtarı
- 1. A — Genin taşınması genotip bilgisidir; ürünün koşula göre saptanmaması ifade düzeyi ve fenotiple ilgilidir.
- 2. C — DNA polimeraz mevcut 3′-OH ucuna nükleotit ekler; uygun uç olmadan uzama başlayamaz.
- 3. B — Kromozomun ilmeklenip süpersarmal domainlere ayrılması uzun DNA'nın nükleoidde paketlenmesini sağlar.
- 4. D — Yarı korunumlu replikasyonda her yavru çift sarmal bir ebeveyn, bir yeni zincir içerir.
- 5. B — Kalıpların antiparalelliği ve polimerazın yalnız 5′→3′ sentez yapması geciken zinciri parçalara ayırır.
- 6. C — Primer giderilip boşluk doldurulduktan sonra DNA parçaları arasındaki son fosfodiester kesiğini ligaz kapatır.
- 7. D — Kalıp 3′-ATGCAT-5′, tamamlayıcı RNA 5′-UACGUA-3′ verir; RNA'da T yerine U kullanılır.
- 8. D — Kodon mRNA'da, ona tamamlayıcı antikodon tRNA'da yer alır.
- 9. A — Bakterinin 30S ve 50S alt birimleri 70S ribozomu kurar; S değerleri basit aritmetik toplam değildir.
- 10. B — Dizi değişmeden çevresel uyarıyla gen ifadesinin artması indüksiyondur.
- 11. B — A→G iki pürin arasında transition'dır; amino asit değişmiyorsa protein sonucu sessizdir.
- 12. A — Bir bazlık insersiyon sonraki üçlü gruplamayı kaydırır; üç bazlık ekleme çerçeveyi koruyabilir.
- 13. C — UAG dur kodonudur; erken dur sinyali nonsense mutasyonun belirleyici sonucudur.
- 14. A — Farklı konumdaki ikinci mutasyonun fenotipi geri çevirmesi suppressor mutation tanımına uyar.
- 15. B — Aktarılabilir ilaç direnci genleri taşıyan plazmid grubu R faktörüdür.
- 16. C — Serbest DNA'nın kompetan alıcı tarafından alınması transformasyondur; canlı verici teması gerekmez.
- 17. D — F plazmidinin bir zinciri alıcıya geçer, iki hücrede tamamlayıcı sentez yapılır; sonunda ikisi de F⁺ olur.
- 18. C — Profajın hatalı ayrılması yalnız yakın konak genlerini taşır; bu özelleşmiş transdüksiyondur.
- 19. D — İçeri girmiş antibiyotiğin pompayla dışarı çıkarılması aktif eflukstur; girişin engellenmesi farklı mekanizmadır.
- 20. B — Önceden duyarlı bakteride sonradan direnç kazanılmıştır; beta-laktamaz ilacı enzimatik olarak inaktive eder.
Slayt notları, düzeltmeler ve kaynak haritası
Slayttaki belirsizlikler ve doğrulama
- Slayt 13 — “operon or islands”: Slayt iki gen kümesini aynı satırda anar. Operon birlikte düzenlenen transkripsiyon birimidir; genomik ada ise genellikle daha geniş, çeşitli işlevler taşıyabilen kromozomal bölgedir. Bu ayrımı rehberde korudum. Bkz. NCBI Bookshelf, Medical Microbiology: Regulation of Gene Expression ve genomik adalara ilişkin araştırma.
- Slayt 26 — ATGCAT→UACGUA: Eşleşme yalnız verilen DNA'nın kalıp zincir olduğu varsayımıyla yazılabilir; slayt 5′/3′ yönünü belirtmez. Rehberde kalıp 3′-ATGCAT-5′, RNA 5′-UACGUA-3′ biçiminde gösterildi. Bkz. NCBI Bookshelf, Molecular Biology of the Cell: From DNA to RNA.
- Slayt 29 — “Bakteri kromozomunda intron yoktur”: Mutlak ifade doğru değildir. Bakterilerde özellikle hareketli group II intron örnekleri tanımlanmıştır; ökaryotlardaki yaygın intronlu gen düzeni bakteriler için tipik değildir. Bkz. NCBI PubMed, Group II introns in the bacterial world ve bakteriyel grup II intronları veritabanı çalışması.
- Slayt 56 — transpozonun yalnız kopyalanarak hareket ettiği anlatımı: Slayt replikatif yolu tarif eder. DNA transpozonları için konservatif kes-yapıştır yolu da bulunur; iki yol karıştırılmamalıdır. Bkz. NCBI Bookshelf, Genomes: Mutation, Repair and Recombination.
- Slayt 60 — Gram negatif “çift zincirli DNA alır”: Dış zardan periplazmaya çift zincirli DNA girebilir; sitoplazmik zarı geçerken genellikle bir zincir taşınır, diğeri yıkılır. Bu nedenle slayt 59 ile gerçek çelişki, “alım”ın hücresel aşamasının belirtilmemesidir. Bkz. Natural Competence and the Evolution of DNA Uptake Specificity ve The Ins and Outs of DNA Transfer in Bacteria.
- Slayt 68 — lizojenik süreçte eksik basamak: Şekil, metnin atladığı indüksiyon ve profajın nadir hatalı ayrılmasını gösterir. Yakın galaktoz genlerinin özelleşmiş transdüksiyonla taşınması böyle açıklanır; rehberde şeklin basamakları izlendi.
Bölüm–slayt eşleşmesi
| Rehber bölümü | Slaytlar | İçerik |
|---|---|---|
| 1. Genetik bilginin taşıyıcıları ve bakteri kromozomu | 1–15 | Hücre tipleri, genotip–fenotip, DNA/RNA, nükleotit, süpersarmal, kromozom örnekleri ve E. coli |
| 2. Bilginin akışı | 16–35 | Merkezî dogma, replikasyon enzimleri, transkripsiyon, translasyon, katlanma ve ifade düzenlenmesi |
| 3. Mutasyonlar | 36–50 | Tanım ve hız, mekanizma/sonuç sınıflaması, mutajenler ve önem |
| 4. Aktarım, plazmidler ve hareketli öğeler | 51–56 | Dikey/yatay aktarım, F/R/Col, uygulama, transpozon ve yeniden düzenlenme |
| 5. Transformasyon | 57–60 | Üç yatay yolun ayrımı, Griffith, DNA alımı ve kompetans |
| 6. Konjugasyon | 61–64 | F plazmidi, pilus, verici–alıcı eşleşmesi ve tek zincir aktarımı |
| 7. Transdüksiyon ve rekombinasyon | 65–69 | Litik/lizojenik döngü, genelleştirilmiş/özelleşmiş aktarım ve rekombinasyon |
| 8. Antibiyotik direnci | 70–72 | İntrinsik/kazanılmış direnç, beş etki yolu ve aktarılabilir beta-laktamaz örnekleri |